
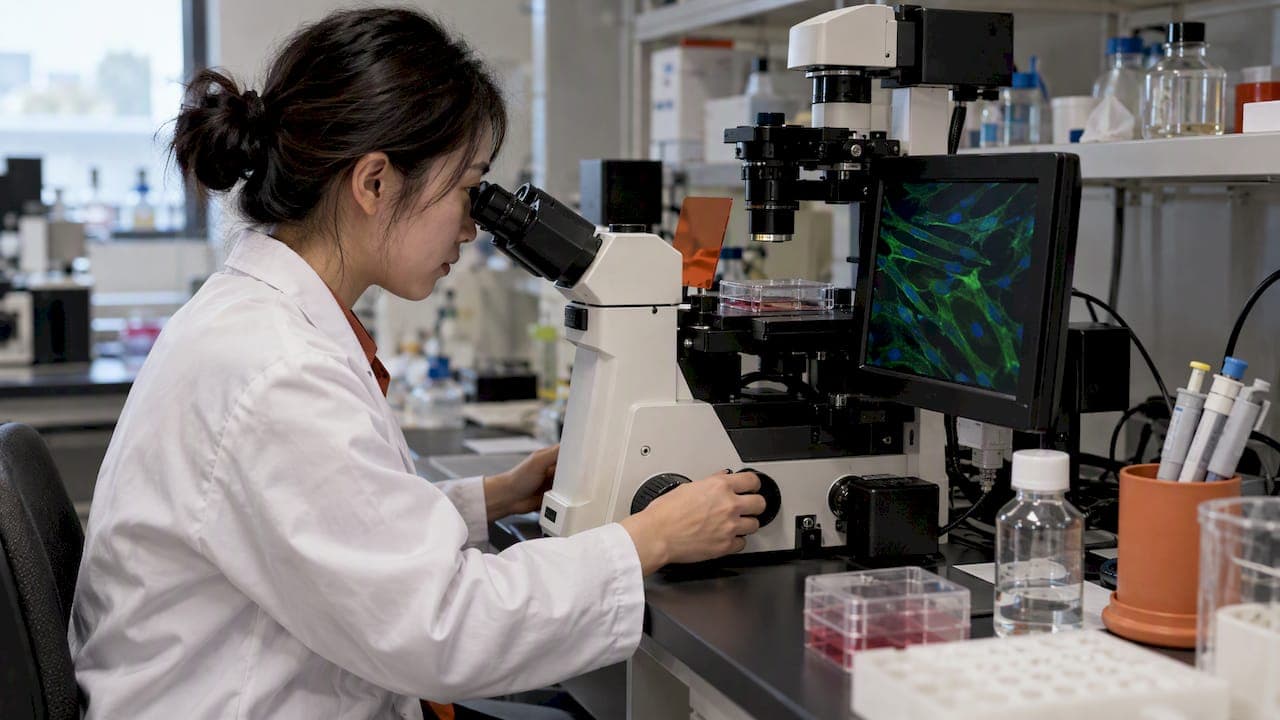
对常规实验室而言,用定义的无转基因小分子与生长因子诱导,再配合后期的 3D 肌束或运动神经元共培养,最有机会在可控时间内得到可收缩的肌管。判断成熟看三项证据:MYH 亚型从胎儿型切换为成体型,电镜下可见肌节与三联体,对电刺激有收缩与钙瞬变。高通量药筛可取短周期流程,需要接近成体表型则要延长培养并引入工程化手段。
简述:
- 药物筛选重视通量时选短周期二维流程;研究收缩或移植时,则延长培养并考虑三维肌束或神经共培养。
- 肌前体衍生的三维肌束可在 2 至 4 周内自发收缩;若需电镜观察肌节与三联体,培养通常须超过 6 周。
- 成熟须验证 MYH 亚型转向成体型、电镜下的三联体,以及电刺激引发的收缩和钙瞬变,条纹本身不足为证。
- 终末分化前富集 CD56 等肌前体,有助于减少批间差异;同时固定接种密度、涂层和培养基批次,并统一融合指数判读。
目录
- 如何降低不同 iPSC 系之间的批间差异?
- 如何降低不同 iPSC 系之间的批间差异?
- 培养基、表面基质与促成熟添加剂该怎么选、何时加?
- 工程化与共培养怎样提升肌管成熟度?
- 怎样判断体外肌管是否成熟?分子、超微结构与功能三类指标
- 如何提高分化的重复性并做好质量控制?
- 不同研究目的该如何调整策略?
- 如何降低不同 iPSC 系之间的批间差异?
- 我们能为你的肌管项目做什么?
- 常见问题
- 来源
iPSC 肌管分化有哪几条路线可选?
先说结论:路线没有绝对优劣,取决于你要的是通量、成熟度,还是避免外源基因。下面按三类主流策略拆开。
- 无转基因的小分子与生长因子路线。 通过 CHIR99021 等 Wnt 激动剂、TGF-β 抑制剂分步引导中胚层、体节样细胞和肌系前体,不整合外源序列,适合疾病建模和药物反应研究。代价是周期长、批间差异更依赖操作细节。有研究在不强制表达基因的条件下,经 PAX7 标记的肌卫星样细胞富集、Matrigel 覆盖和 N2 补充,观察到自发收缩与三联体结构,并在第 42 天看到成熟相关基因显著上调。
- 转录因子诱导路线(MYOD1、PAX7)。 用多西环素调控 MYOD1 表达,可以很快得到多核肌管,通量高,适合做表型筛选。但超微结构成熟往往落后于分子标记,Z 线与 M 线排列不整齐是常见现象。PAX7 诱导系(iPAX7)则能扩增出肌前体,后续可用于分化或移植研究。
- iMPC 与 iMuSC 路线。 先得到可扩增的肌前体或肌卫星样细胞,冻存后再批量分化。它的最大优势是把「前体制备」与「终末分化」拆成两步,便于标准化。在优化的 3D 条件下,由 hPSC 衍生的 iMPC 可在 2 至 4 周内形成自发收缩的肌束,对电刺激出现钙瞬变,并产生可测量的 twitch 与 tetanus 收缩力。
怎么选?做药物筛选,优先均一、短周期的路径,让染色和成像读出稳定。做功能或移植相关研究,则优先能走到更成熟谱系的流程。iPAX7 来源的肌原细胞移植入小鼠肌肉后,转录谱更接近成人肌纤维,成人型 MYH1、MYH2 上调,胚胎型 MYH3、MYH8 下调,说明这条谱系本身有较高的成熟潜能。
从 iPSC 到肌管的示范性分化方案怎么做?
下面是一套可以直接拿来做试点的时间线。它综合了上述文献的共同做法,具体浓度和天数请以你所用细胞系的预实验为准,把它当作优化起点,而不是固定配方。
起始准备。 使用未自发分化、传代次数较低的 iPSC,克隆边缘整齐、中心无明显分化灶。传代时短期加入 Y-27632 保护单细胞,次日换液去除。接种密度要记录并固定,因为密度会直接影响后续中胚层诱导的效率。
- 第 0 至 3 天,中胚层诱导。 用小分子 CHIR99021 激活 Wnt,配合 TGF-β 通路抑制剂(如 SB431542)。这一阶段对时窗最敏感,每天同一时间换液,避免长时间暴露造成细胞死亡或分化偏移。若走转录因子路线,则在此时间窗按方案启动多西环素诱导 MYOD1 或 PAX7 表达。
- 第 3 至 10 天,体节与肌系前体特化。 切换到含生长因子的基础培养基,让细胞逐步表达体节与肌系前体标志。此时可抽样做免疫染色,检查 PAX3、PAX7 等是否出现。出现大面积死亡或形态异常时,优先回查起始密度与第一阶段的暴露时长。
- 前体富集。 有条件的话,用 CD56 或 ERBB3、NGFR 等表面标记做 FACS 或 MACS 富集,再重新铺板。这一步可帮助降低批间差异。若走 iPAX7 或 iMuSC 路线,也在这里完成前体扩增与冻存。
- 终末分化。 换成定义的差异化培养基,常见做法是 B27 与 N2 补充的无血清体系,也可使用商业 fusion 培养基。球体培养的研究提示,B27 无血清补充能显著增强肌生成与成熟。此阶段适当加入 IGF1 促进肥大与收缩成熟,需要三联体和神经肌接头时再引入 Agrin。
- 覆盖或包埋。 如走 Matrigel 覆盖路线,在肌管开始融合时加一层覆盖,减少贴壁培养中肌管脱落。走 3D 路线则在此时把细胞与纤维蛋白或凝胶基质混合,成束培养。
- 第 6 周及以后,延长培养与终点测定。 要看电镜肌节结构,培养期通常需要超过 6 周。上述球体培养工作显示,延长终末分化超过 6 周后,电镜下才能检出肌节相关的关键结构。
专业提示: 在第 7、14、28、42 天各固定一个取样节点,同一批细胞同时留 RNA、固定样品和活细胞功能样品,事后才能把分子、结构和功能数据对到同一时间点上。
关于周期长短的取舍,可以这样理解。短周期流程可用于 MHC 阳性肌管的染色计数与成像,但通常停在胎儿样阶段。延长到 6 周以上,肌节和三联体才逐渐清晰,代价是换液次数多、污染与脱落风险累积,单批成本也更高。
不同 iPSC 系之间需要微调的参数主要是三个:起始接种密度、中胚层诱导的小分子暴露时长、终末分化的换液频率。经验上,增殖快的细胞系宜降低接种密度并缩短诱导,生长慢的则相反。每调整一次,都在记录表里写明,别靠记忆。
更完整的周期安排可参考我们的iPSC 建模时间线,里面把取样到药筛的各环节时长放在一起对照。
培养基、表面基质与促成熟添加剂该怎么选、何时加?
这部分的核心逻辑是:先把变量定义清楚,再在合适的时间窗引入促成熟因子,而不是一开始就把所有东西都加上。
表面基质。 laminin、Geltrex 与 Matrigel 各有取舍。laminin 成分较明确,利于重复;Geltrex 和 Matrigel 来源于小鼠肿瘤基质,生长因子残留与批间差异更大,但对肌管贴附和覆盖培养很实用。无论选哪种,都应记录批号,新批次先小规模试用再大规模使用。
血清与定义体系。 传统做法在融合期使用马血清,效果稳定但成分不明,会削弱可重复性。现在更常用无血清的定义体系,以 B27、N2 补充为主。个别优化方案要求在特定时间窗短暂使用马血清或特定 fusion 培养基,这类协议对换液顺序很敏感,照搬时务必严格还原时间点。
- IGF1。 补充 IGF1可把人源肌管推向更成熟的代谢与收缩表型,增强可诱导的收缩能力,并提高氧化与胰岛素敏感性。建议在肌管已经融合形成后引入,而不是在前体扩增期加入,以免促进前体过早退出增殖。
- Agrin。 有助于乙酰胆碱受体成簇和三联体形成,是做神经肌接头研究时的必备因子。同样在终末分化期加入。
- B27 与 N2。 提供无血清条件下的基础营养与激素支持,是从血清体系迁移到定义体系的关键。
- 覆盖与包埋基质。 Matrigel 覆盖可明显降低肌管脱落,适合长周期培养。
具体浓度请以所依据文献的方法部分为准,不同细胞系和批次的最适浓度不同,建议做一个小梯度预实验,而不是直接套用单一数值。
专业提示: 换培养基体系时不要一次替换全部成分。先只改血清为 B27 或 N2,确认融合率稳定,再逐步引入 IGF1 与 Agrin,这样出了问题才能定位是哪个变量造成的。
工程化与共培养怎样提升肌管成熟度?
标准二维培养很难复刻成体肌肉的力学与神经信号环境,这也是体外肌管常保留胎儿样转录特征的原因之一。有专家评论认为,成体肌肉环境提供的机械加载与神经支配等提示,是普通培养条件难以完整重现的。工程化与共培养就是为了补上这一块。
- 3D 肌束(myobundle)构建。 把肌前体与纤维蛋白或类似凝胶基质混合,铸入带锚点的模具,细胞会沿张力方向排列、融合。成束培养通常以周为单位,前述 iMPC 研究显示,培养可形成具有肌节结构并能进行力学读出的肌束。
- 机械拉伸与电刺激。 周期性拉伸与低频电刺激有助于肌节沿同一方向对齐,改善兴奋收缩耦合。参数范围各家差异较大,起步时宜从较温和的强度与较短的单次时长开始,再逐步爬升,避免肌管撕裂。
- 运动神经元共培养。 与同源 iPSC 来源的运动神经元共培养,可形成功能性神经肌接头。相关研究在定义的无血清小分子协议下,观察到 RyR 与 DHPR 的分布以及乙酰胆碱受体成簇,并在同源共培养体系中实现了神经刺激诱导的肌收缩。双室系统可以让神经元胞体与肌管分隔,只让轴突穿过,便于分别给药与观察。
- 通量与成本。 3D 肌束与力学读出需要模具、力传感或显微追踪设备,单孔成本和操作时间远高于二维孔板。共培养还要同时维持两套分化流程。判断是否值得投入,可参考我们关于二维与三维培养取舍的决策流程,神经元一侧的分化与验证则见iPSC 神经元分化全流程与运动神经元模型选择。
怎样判断体外肌管是否成熟?分子、超微结构与功能三类指标
单一标记无法证明成熟,至少要同时覆盖分子、超微结构和功能三类证据。三类证据之间还常常不同步:分子标记往往最先出现,超微结构落后,功能读出则取决于前两者是否到位。

分子层面。 看肌球蛋白重链亚型的切换。胎儿或未成熟型为 MYH3、MYH8,成体型为 MYH1、MYH2、MYH4。体外肌管通常以前者为主,成体型表达上调意味着向成熟推进。这一切换的意义在于,肌球蛋白亚型直接决定收缩速度与能量代谢特征,是最贴近功能的转录层指标。
超微结构层面。 光镜下看到条纹或 Titin 染色,并不等于成熟。更严格的标准是电镜下 T 管与肌质网形成三联体,兴奋收缩耦合装置完整组装。需要强调的是,超微结构成熟往往落后于分子标记,Z 线、M 线排列不整是常规分化的常见状态,延长培养与引入工程化基底有助于改善。
功能层面。 包括静息膜电位、电刺激下的 twitch 与 tetanus 收缩、钙瞬变。膜电位用膜片钳测定,收缩力在 3D 肌束上用力传感器读出,钙瞬变用钙指示剂成像,三者互相印证。
- MYH 亚型表达谱。 用定量 PCR 或免疫染色比较 MYH3、MYH8 与 MYH1、MYH2、MYH4,看比例而非单个基因的有无。
- 电镜下的三联体与 Z 线、M 线。 把能否观察到清晰排列的三联体作为较严格的成熟证据,其余结构作为辅助。
- 静息膜电位与膜片钳。 与原代卫星细胞来源的肌纤维作对照,才有参照意义。
- twitch 与 tetanus 力学。 在 3D 肌束上测定,并按横截面积归一化后再与文献对比。
- 钙瞬变对电刺激的响应。 看是否随刺激频率改变而同步,并能在撤去刺激后恢复。
静息膜电位可作为功能评估指标,宜与原代卫星细胞来源的肌纤维作对照。 膜电生理评估结果说明,肌管在这一方面可以接近原代肌纤维,但并不意味着结构与转录同样成熟,所以不能只凭它下结论。
多参数组合的原则很简单:只有三类证据互相吻合,才可以说模型接近成体肌肉。若分子标记很好而超微结构和力学很差,更稳妥的表述是「具有成熟倾向的收缩性肌管」。另有一点值得提醒:即便用上述工程化手段,体外肌管的转录谱通常仍带胎儿化特征,要逼近成人转录型,往往需要 3D 工程化或与神经、血管细胞共培养。
如何提高分化的重复性并做好质量控制?
批间差异是 iPSC 肌管最常见的痛点。下面几步可以落地。
- 前体富集。 在终末分化前用 FACS 或 MACS 做富集,常用标记有 CD56,也可用 ERBB3 与 NGFR 组合。插入点放在前体扩增之后、终末分化之前,这样既保证纯度,又不会让细胞在分选压力下直接进入融合期。
- 接种密度标准化。 把起始密度、终末分化铺板密度、换液频率写进固定的操作规程,而不是凭经验手感。密度偏低会降低融合率,偏高则容易局部过密、中心脱落。
- 涂层与培养基批号。 同一实验内尽量使用同一批涂层和同一批生长因子,换批时设一个平行对照孔。
- 记录要点。 样本来源、iPSC 传代次数、培养基与涂层批号、融合率、MHC 阳性比例,以及任何异常观察,都要随样品一并留档。
专业提示: 每批分化至少留一孔固定做 MHC 与细胞核双染,用同一套阈值计算融合指数。哪怕这一批最终不用,这个数字也是日后排查批间差异时最可靠的比较基准。
患者来源细胞的差异比对照株更大,更系统的做法可以参考我们整理的提高患者细胞实验重复性的关键方法。
不同研究目的该如何调整策略?
同一套流程不可能同时满足所有用途,要先把目标放在前面。
高通量药物筛选。 重点是均一、快速和成像友好,目标是大量稳定的 MHC 阳性肌管。选短周期、已富集前体的二维流程,读出以形态和染色为主,成熟度要求可以放低,但批间一致性必须最优先保证。
疾病机理与表型研究。 如果表型涉及收缩、钙处理、膜电位或神经肌接头,就需要更成熟的超微结构与电生理读出。此时应延长培养,并考虑 3D 肌束或运动神经元共培养,宁可降低通量,也要保证读出可靠。
移植或工程化组织。 除了超微结构,还要额外考虑血管化与免疫相容性。体内环境本身能促进转录成熟,这也是评估移植前模型时需要把体内数据考虑进来的原因。
我们在患者来源 iPSC 肌管模型上的实践视角
在我们看来,肌管分化最大的误区是把「做出肌管」当成终点。我们做患者来源 iPSC 模型和并行药物筛选,每个项目开始前都会先问一个问题:这条数据最后要回答什么?答案决定我们牺牲通量,还是牺牲成熟度。
我们的常规优先级是:先保证来源明确、可追溯的患者细胞,再选择能稳定复现的分化路径,最后才决定要不要为更高成熟度付出时间与成本。对于超罕见疾病,样本往往只有一份,重复性比极致成熟更重要。
什么时候值得外包?在我们看来有两种情形:只有一份珍贵的患者样本,需要用约 3,000 种已获 FDA 批准的药物做并行筛选;或者需要整理成符合 IND 申报要求的数据包。这时把流程交给团队,可能比自行摸索更省时间。
我们的观点是:一套 iPSC 肌管模型的价值,取决于它回答问题时有多可靠,而不是它看起来有多像成体肌肉。
— John
我们能为你的肌管项目做什么?
如果你的团队卡在肌管分化的重复性、成熟度验证或药筛通量上,我们可以直接接手其中的环节。我们提供患者来源 iPSC 疾病模型构建与生物样本库保存、约 3,000 种已获 FDA 批准药物的高通量筛选、定制反义寡核苷酸(ASO)的设计合成与体外挽救验证,以及面向 IND 的数据包与合规准备。
适合外包的情形很明确:样本稀少、时间紧迫,或需要统一标准的数据供基金会与合作药企评审。对于只有单一患者来源细胞的项目,我们还可以先做一次可行性评估,给出发现路线图,再决定是否投入完整筛选。
下一步很简单:把你的疾病背景、样本情况和目标读出告诉我们,我们会给出建议的路线与时间安排。前往我们的服务页面提交咨询即可。
常见问题
iPSC 肌管分化大概需要多长时间?
取决于你要的成熟度。短周期流程可得到 MHC 阳性肌管,适合筛选。要在电镜下看到肌节与三联体,培养期通常需要超过 6 周,球体培养的研究就观察到了这一点。
为什么我的肌管有条纹却不收缩?
光镜下的条纹或 Titin 染色并不代表成熟,真正的标志是三联体与完整的兴奋收缩耦合装置。建议补测电镜与钙瞬变,并检查是否缺少 IGF1 等促成熟条件。
无转基因路线和转录因子诱导路线怎么选?
要快速、均一、高通量,转录因子诱导更合适。要避免外源基因整合,或更关注成熟与体内行为,选无转基因或 iPAX7 路线更稳妥。药筛偏前者,功能与移植研究偏后者。
如何降低不同 iPSC 系之间的批间差异?
终末分化前先用 CD56 等标记做前体富集,并固定接种密度、涂层与培养基批号。每批留一孔做 MHC 与细胞核双染,用同一套阈值计算融合指数。
来源
- Engineering human pluripotent stem cells into a functional skeletal muscle tissue
- Differentiation and sarcomere formation in skeletal myocytes directly prepared from human induced pluripotent stem cells using a sphere-based culture - PMC
- The adult environment promotes the transcriptional maturation of human iPSC-derived muscle grafts
- IGF1 promotes human myotube differentiation toward a mature metabolic and contractile phenotype