
Доминантно-негативное моделирование — это создание мутаций или экспериментальных систем, в которых мутантный белок активно нарушает функцию белка дикого типа, а не просто выпадает из работы. Отсюда практическое правило: если фенотип воспроизводится только при совместной экспрессии мутанта и нормального аллеля и усиливается дозозависимо, перед вами не haploinsufficiency, а доминантно-негативный (DN) эффект, и терапию нужно строить на подавлении мутантного продукта, а не на добавлении копий здорового белка.
Кратко:
- Для доминантно-негативных эффектов важна стратегия подавления мутантного продукта, а не увеличение количества здорового белка, поскольку мутантный белок активно отравляет комплекс.
- Мутации, действующие через DN-механизм, чаще всего локализуются на интерфейсных участках или вблизи них, вызывая сильное снижение активности комплекса даже при неполной мутации.
- Использование регуляторных систем и кривых доза-эффект помогает определить, является ли эффект действительно DN или просто токсическим gain-of-function.
- Прямое моделирование DN-эффектов требует allele-specific контроля, анализа агрегации и физиологически обоснованной экспрессии.
- Точечное структурное и функциональное исследование вместе с массивными скрининг-контрольными тестами повышает точность оценки механизма заболевания.
Содержание
- Молекулярная основа доминантно-негативных эффектов
- Экспериментальные подходы к моделированию DN-эффектов
- Вычислительные методы и ограничения предсказателей для DN/GOF
- Терапевтические последствия: почему увеличение wild-type не решает проблему
- Практические протоколы, контрольные шаги и частые ошибки при моделировании DN
- Как Hopeatrarelabs применяет подходы к моделированию DN
- Исторический обзор открытия и развития концепции DN-моделирования
- Примеры наиболее изученных доминантно-негативных мутаций
- Методы валидации доминантно-негативного эффекта in vivo и in vitro
- Возможности и ограничения животных моделей для изучения DN-эффектов
- Куда движется исследование DN-механизмов
- Услуги Hopeatrarelabs для моделирования случаев с доминантно-негативным механизмом
- Источники
- Часто задаваемые вопросы
Молекулярная основа доминантно-негативных эффектов
DN-эффект почти всегда рождается там, где белок работает не в одиночку, а в составе мультимерного комплекса. Мутантная субъединица встраивается в димер, тетрамер или более сложную структуру вместе с субъединицами дикого типа и «отравляет» весь комплекс изнутри. В гетерозиготе это даёт результат хуже, чем можно было бы ожидать от простой потери одного аллеля: активность комплекса способна упасть значительно ниже 50%, потому что мутантные субъединицы нейтрализуют нормальные, а не просто отсутствуют, как это описано в обзоре молекулярной этиологии доминантно-негативных мутаций.
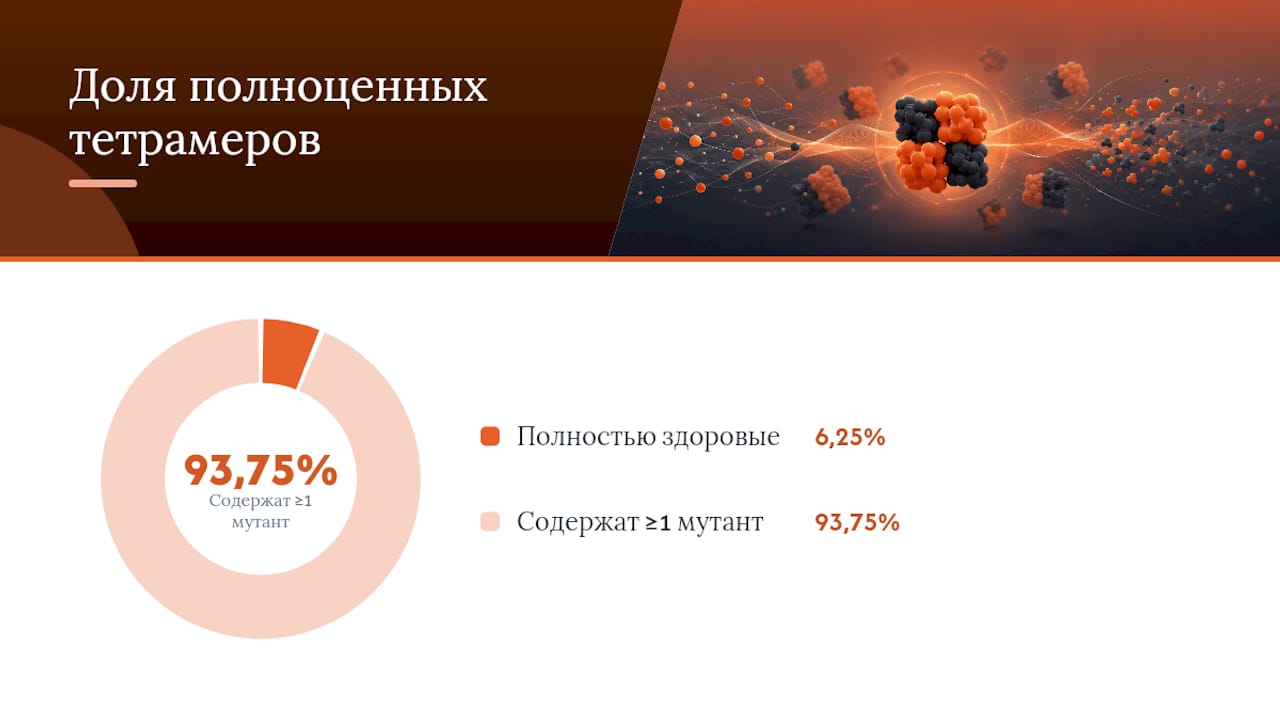
Эту логику удобно проверить простой комбинаторной моделью случайного смешивания субъединиц. Для тетрамера при равной экспрессии дикого типа и мутанта доля полностью «здоровых» комплексов теоретически составляет всего 6,25%, если каждая позиция независимо занимается любым из двух вариантов белка. На практике доля активных комплексов может быть выше из-за стехиометрических ограничений или кооперативной сборки, но сама модель даёт исследователю нулевую гипотезу, с которой можно сравнивать экспериментальные данные.
Ключевая статистика: сравнительный анализ патогенных миссенс-мутаций показал, что варианты, действующие через доминантно-негативный или gain-of-function механизм, в среднем гораздо меньше дестабилизируют структуру самого мономера, чем классические loss-of-function мутации: средний модуль изменения свободной энергии складывания (ΔΔG) для LOF значительно выше, чем для DN/GOF, с величинами, которые в разных исследованиях оцениваются в определённых диапазонах, по данным исследования в Nature Communications. Мутация, которая почти не портит стабильность самого белка, но при этом полностью выключает комплекс, обычно бьёт точно по интерфейсу взаимодействия, а не по гидрофобному ядру.
То же исследование фиксирует статистическое обогащение DN-мутаций на интерфейсных позициях и их склонность к пространственной кластеризации в 3D-структуре комплекса. Практический вывод для лаборатории:
- Мутация с низким ΔΔG мономера, но расположенная на границе субъединиц, — кандидат номер один на DN-механизм, а не на банальную потерю функции.
- Кластеризация нескольких патогенных вариантов в одной зоне интерфейса на структуре комплекса — сильный сигнал в пользу DN-гипотезы, даже если каждая мутация по отдельности выглядит «мягкой».
- Стабильность мономера сама по себе — плохой предиктор DN-эффекта; нужен взгляд на комплекс целиком.
Отдельный слой сложности добавляет котрансляционная сборка. Многие мультимерные комплексы начинают собираться ещё до того, как синтез полипептидной цепи завершён, и это может частично буферировать потенциальный DN-эффект, ограничивая долю смешанных комплексов способом, который классическая модель случайного смешивания не учитывает, как отмечается в обзоре о котрансляционной сборке макромолекулярных комплексов. Для интерпретатора данных это означает: расхождение между предсказанной по модели долей неактивных комплексов и реально наблюдаемым фенотипом не обязательно ошибка эксперимента — оно может отражать биологию сборки.
Экспериментальные подходы к моделированию DN-эффектов
Построить убедительную DN-модель сложнее, чем сделать нокаут. Нокаут отвечает на вопрос «что будет без белка», а DN-конструкция должна воспроизвести конкретный механизм интерференции — и здесь ошибки в дизайне встречаются постоянно.
Как выбрать стратегию дизайна мутанта
- Точечные миссенс-мутации в интерфейсе. Если структурные данные или предсказания ΔΔG указывают на конкретный контакт между субъединицами, воспроизведение патогенного варианта в этой позиции — самый физиологичный вариант, максимально близкий к клинической ситуации.
- Доменные делеции с сохранённым интерфейсом связывания. Убирается функциональный домен (например, каталитический или ДНК-связывающий), но домен олигомеризации остаётся нетронутым — мутант продолжает встраиваться в комплекс, но не выполняет работу.
- Конкурирующие укороченные конструкции. Экспрессия только домена димеризации без остальной части белка часто даёт мощный, но менее физиологичный DN-эффект — полезно для скрининга гипотез, но требует осторожной интерпретации на клиническом уровне.
Титрация экспрессии — вторая обязательная часть протокола. Многие лаборатории по инерции используют конститутивные промоторы высокой силы (CMV, CAG), а затем удивляются, почему фенотип выглядит гораздо тяжелее, чем в клинике. Регулируемые системы вроде Tet-On/Tet-Off позволяют плавно менять уровень экспрессии мутанта и находить дозу, при которой соотношение мутант/дикий тип приближается к гетерозиготному состоянию пациента, а не к искусственному избытку. Рекомендация использовать индуцируемые промоторы и проверять физиологичность уровней экспрессии — не факультативная деталь, а условие валидности всей модели, как подчёркивается в обзоре механизмов loss-of-function, gain-of-function и dominant-negative мутаций.
Профессиональный совет: Прежде чем делать выводы о механизме, постройте кривую доза-эффект по экспрессии мутанта на фоне фиксированного уровня дикого типа. Если фенотип усиливается линейно или сверхлинейно с ростом дозы мутанта, это говорит в пользу DN; если эффект насыщается сразу при низкой дозе и не растёт дальше, вероятнее просто toxic gain-of-function другой природы.
Обязательный набор контролей для любой DN-модели выглядит так:
- Rescue-эксперимент с избыточной экспрессией дикого типа поверх мутанта — истинный DN-эффект не должен полностью устраняться простым добавлением здорового белка, в отличие от простой haploinsufficiency.
- Allele-specific knockdown мутантной мРНК (через siRNA или ASO, различающие аллели по единичному нуклеотиду) с последующей проверкой, исчезает ли фенотип — это прямое доказательство того, что именно продукт мутантного аллеля причина проблемы.
- Анализ агрегации и внутриклеточного трафика мутантного белка методами иммунофлуоресценции или фракционирования — многие «псевдо-DN» фенотипы на деле оказываются следствием неправильной укладки и токсичной агрегации, а не специфической интерференции с комплексом.
Комбинация allele-specific нокдауна с временным восстановлением дикого типа особенно ценна: она отделяет истинный DN-механизм от вторичных эффектов перегрузки клетки чужеродным белком, и именно такой двухсторонний контроль рекомендован в обзорах терапевтических стратегий при эпилепсиях с разными механизмами мутаций. Для белков, полная потеря которых летальна на эмбриональной стадии, DN-конструкции остаются едва ли не единственным способом изучить функцию на более поздних этапах развития, что исторически и было одной из причин появления самого метода, согласно ранним работам по применению DN-мутантов.
Вычислительные методы и ограничения предсказателей для DN/GOF
Стандартные предсказатели патогенности вариантов (VEP), обученные преимущественно на данных о стабильности белка и консервативности последовательности, систематически хуже справляются с доминантно-негативными и gain-of-function вариантами, чем с классическим loss-of-function. Причина в самой природе DN-мутаций: они, как уже отмечалось, часто слабо меняют стабильность мономера, зато сильно бьют по межмолекулярным контактам, а именно эту информацию большинство VEP просто не видит, если не подключён отдельный структурный слой анализа.
Практические поправки, которые стоит вносить при работе с потенциально доминантно-негативными вариантами:
- Считать ΔΔG не только для изолированного мономера, но и для комплекса с учётом интерфейса связывания.
- Проверять пространственную кластеризацию патогенных вариантов на 3D-структуре — скопление нескольких известных мутаций в одной зоне интерфейса усиливает подозрение на DN-механизм.
- Не полагаться на один инструмент: интегрировать несколько источников сигнала, включая функциональные данные, там, где они доступны.
| Подход | Что оценивает | Основное ограничение |
|---|---|---|
| Классический VEP (консервативность, ΔΔG мономера) | Общую патогенность варианта | Слабо чувствителен к межмолекулярным DN-эффектам |
| Структурный анализ интерфейса и 3D-кластеризация | Расположение варианта на границе субъединиц | Требует качественной структуры комплекса |
| Deep mutational scanning (DMS) | Функциональный эффект тысяч вариантов параллельно | Дорог и не универсален для всех белков |
Здесь и вступает в игру deep mutational scanning. DMS позволяет одновременно профилировать функциональный эффект тысяч вариантов одного белка и получить эмпирическую подпись механизма действия для каждого из них, вместо того чтобы полагаться исключительно на предсказание. Такой массовый функциональный скрининг служит фактическим золотым стандартом для проверки вычислительных гипотез о DN и GOF, как показано в работе о полномасштабном предсказании механизмов доминантных генетических заболеваний. Та же работа предлагает предсказания механизма для всего референсного протеома человека — удобный стартовый ресурс для приоритизации вариантов перед тем, как вкладываться в дорогостоящую экспериментальную валидацию.
Комбинация из трёх слоёв, структурного анализа интерфейса, предсказаний по всему протеому и точечного DMS на кандидатных вариантах, даёт заметно более надёжную картину, чем любой из методов по отдельности.
Терапевтические последствия: почему увеличение wild-type не решает проблему
Механистическая классификация мутации напрямую определяет, какая терапия вообще может сработать. Для чистого loss-of-function логика проста: не хватает функционального белка, значит нужно добавить его извне, генной терапией, заместительной белковой терапией или коррекцией сплайсинга. Для доминантно-негативного механизма эта логика ломается: добавление ещё одной копии дикого типа не решает проблему, если избыток мутантного белка продолжает отравлять новые молекулы комплекса. Нужна другая стратегия, направленная на снижение количества или активности именно мутантного продукта, как систематизировано в обзоре терапевтических подходов при эпилептических каналопатиях с разными механизмами.
Основные направления, применимые именно к DN и GOF-механизмам:
- Allele-specific антисмысловые олигонуклеотиды (ASO), различающие мутантный и нормальный транскрипт по единичной нуклеотидной замене или сцепленному однонуклеотидному полиморфизму, снижают экспрессию только токсичного аллеля, не затрагивая здоровую копию.
- Стратегии направленной деградации мутантного белка на уровне РНК или белка, вместо полного нокдауна гена, полезны, когда аллель-специфичный дизайн затруднён из-за близости последовательностей.
- Редактирование генома, точечно корректирующее мутантный аллель, теоретически устраняет проблему у источника, но остаётся ограниченным по доставке и эффективности для многих тканей и типов клеток.
- Комбинированные подходы, одновременно подавляющие мутантный продукт и восполняющие функцию дикого типа, иногда необходимы там, где чистого подавления недостаточно для восстановления фенотипа.
У каждого из этих подходов есть своя цена: allele-specific ASO требуют, чтобы между аллелями была достаточная генетическая разница для избирательного связывания, редактирование генома сталкивается с ограничениями доставки in vivo, а комбинированные схемы усложняют регуляторный путь и повышают стоимость разработки. Различение LOF и DN/GOF в этом смысле не академическое упражнение, а развилка, определяющая всю дальнейшую программу разработки терапии.
Практические протоколы, контрольные шаги и частые ошибки при моделировании DN
Большинство ложноположительных выводов о DN-механизме рождается не из плохой биологии, а из небрежного дизайна эксперимента. Три системные ошибки повторяются из лаборатории в лабораторию.
- Экспрессия мутанта на нефизиологичном уровне. Сильный конститутивный промотор создаёт избыток мутантного белка, которого никогда не бывает у реального гетерозиготного пациента, и любой эффект в такой системе рискует быть артефактом дозы, а не отражением истинного механизма.
- Отсутствие rescue- и allele-specific контролей. Без совмещения экспрессии дикого типа и избирательного нокдауна мутантной мРНК невозможно отличить настоящую доминантно-негативную интерференцию от простой клеточной токсичности перегруженного белка.
- Игнорирование протеостатической нагрузки. Гиперэкспрессия почти любого белка, даже нормального, способна перегрузить систему шаперонов и убиквитин-протеасомную систему клетки, создавая стрессовый фенотип, который легко спутать со специфическим DN-эффектом.
Профессиональный совет: Всегда включайте параллельную линию с гиперэкспрессией безобидного контрольного белка сопоставимого размера на том же уровне промотора. Если стрессовый фенотип появляется и в этой линии, проблема в нагрузке на клетку, а не в специфике вашей мутации.
Проверка агрегации через ко-иммунопреципитацию с меткой дикого типа помогает подтвердить, что мутант физически встраивается в комплекс, а не просто плавает отдельно и разрушается деградационными путями клетки, не влияя на нормальные молекулы.
Как Hopeatrarelabs применяет подходы к моделированию DN
Когда генетический анализ пациента указывает на вероятный доминантно-негативный механизм, Модель заболевания строится на клетках пациента: получают iPSC, создают CRISPR-скорректированную изогенную контрольную линию и проводят параллельный скрининг большого количества препаратов, а также разрабатывают индивидуальные антисмысловые олигонуклеотиды. Подозрение на DN-механизм проверяется через allele-specific rescue и функциональные тесты на изогенной паре линий, что позволяет отделить эффект мутантного аллеля от фонового шума. Для предварительной оценки случая команде нужны биоматериал пациента и доступная генетическая документация, включая результаты секвенирования и клиническое описание фенотипа.
Исторический обзор открытия и развития концепции DN-моделирования
Термин «доминантно-негативный» вошёл в широкий научный обиход в 1980-х годах, когда исследователи начали намеренно вносить мутации в клонированные гены и экспрессировать их поверх эндогенного дикого типа, чтобы изучить функцию белков, для которых простой нокаут был технически недоступен или летален. Ранние работы по применению доминантно-негативных мутантов как инструмента для изучения функции белка в культуре клеток и в целых организмах, включая исследование DN-мутантов как инструмента изучения белковой функции, заложили методологическую базу, которая с небольшими модификациями используется до сих пор.
С развитием структурной биологии в 1990-х и 2000-х годах концепция обогатилась механистическим объяснением: стало понятно, что большинство доминантно-негативных эффектов реализуется именно через мультимерные комплексы и их интерфейсы, а не через абстрактную «интерференцию». Появление индуцируемых экспрессионных систем сделало возможной точную титрацию, о которой раньше речи не шло, экспрессия либо была, либо её не было. Последнее десятилетие добавило вычислительный слой: массовое секвенирование и предсказательные модели структуры сделали возможным систематический поиск DN-кандидатов в масштабе целого протеома, а не только у отдельных, ранее изученных белков.
Примеры наиболее изученных доминантно-негативных мутаций
Классический хрестоматийный пример, коллагеновые мутации при несовершенном остеогенезе: мутантные цепи коллагена I типа встраиваются в тройную спираль вместе с нормальными цепями и дестабилизируют весь тримерный комплекс, из-за чего фенотип у гетерозигот тяжелее, чем можно было бы ожидать от простой потери одной копии гена.
Другой хорошо задокументированный случай, мутации в гене p53 при синдроме Ли-Фраумени, где мутантная форма белка способна образовывать тетрамеры вместе с диким типом и подавлять его опухолесупрессорную функцию по доминантно-негативному механизму, дополнительно усугубляя предрасположенность к раку.
Мутации в генах ионных каналов при некоторых формах эпилепсии и кардиальных каналопатиях также часто действуют по DN-механизму: субъединица канала с нарушенной структурой встраивается в мультимерный канальный комплекс и портит работу всей поры, а не просто выпадает из сборки. Именно на таких примерах строится клиническая логика выбора терапии, обсуждавшаяся в разделе о терапевтических последствиях. Разнообразие затронутых систем, от структурных белков до транскрипционных факторов и ионных каналов, подтверждает, что DN-механизм не привязан к одному классу белков, а зависит прежде всего от того, работает ли белок в составе олигомерного комплекса.
Методы валидации доминантно-негативного эффекта in vivo и in vitro
In vitro валидация обычно начинается с клеточных линий с контролируемой, индуцируемой экспрессией мутанта на фоне эндогенного или ко-экспрессированного дикого типа. Ключевые методы здесь: ко-иммунопреципитация для подтверждения физического встраивания мутанта в комплекс, функциональные ферментативные или репортёрные анализы для измерения остаточной активности и микроскопия для оценки локализации и агрегации белка.
In vivo валидация требует более осторожной интерпретации. Трансгенные модели с условной, тканеспецифичной экспрессией мутанта (часто на основе Cre-lox систем в комбинации с индуцируемыми промоторами) позволяют воспроизвести гетерозиготное состояние в контексте целого организма и оценить фенотип на уровне тканей и органов, а не только отдельных клеток. Важно, чтобы уровень экспрессии трансгена приближался к физиологическому, иначе результат рискует отражать токсичность гиперэкспрессии, а не специфический DN-механизм, о чём уже говорилось применительно к клеточным моделям.
Золотым стандартом связки in vitro и in vivo данных остаётся комбинация allele-specific нокдауна мутантного транскрипта с параллельной оценкой фенотипа на животной модели: если подавление именно мутантного аллеля устраняет фенотип на обоих уровнях, доминантно-негативная природа эффекта подтверждена с высокой степенью уверенности.
Возможности и ограничения животных моделей для изучения DN-эффектов
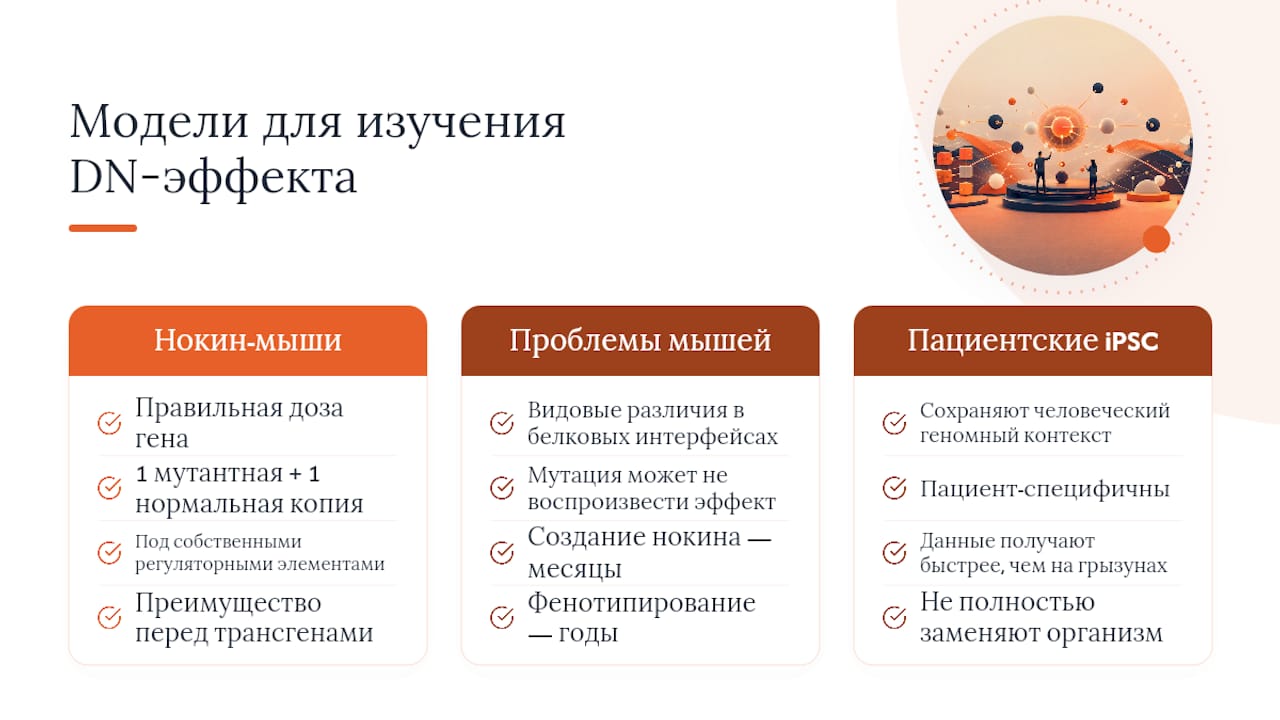
Мышиные модели с нокином патогенной мутации остаются основным инструментом для изучения DN-эффектов на уровне целого организма: они воспроизводят правильную дозу гена (одна мутантная и одна нормальная копия под собственными регуляторными элементами), чего трудно добиться при трансгенной гиперэкспрессии. Это главное преимущество нокин-моделей перед классическими трансгенными линиями с произвольной вставкой конструкции.
Ограничения тоже существенны. Видовые различия в белковых интерфейсах означают, что мутация, доминантно-негативная у человека, не всегда воспроизводит тот же эффект у мыши из-за небольших различий в аминокислотной последовательности на границе субъединиц. Создание точного нокина занимает месяцы, а фенотипирование, особенно для медленно прогрессирующих заболеваний, растягивается на годы. Для летальных на эмбриональной стадии генов нужны условные, тканеспецифичные системы экспрессии, что дополнительно усложняет и удорожает модель.
Именно эти ограничения животных моделей подтолкнули развитие пациент-специфичных клеточных систем на основе iPSC как дополняющего, а для сверхредких заболеваний зачастую и основного инструмента: они сохраняют человеческий геномный контекст пациента и позволяют получить данные быстрее, чем полноценная программа на грызунах, хотя и не заменяют организменный уровень фенотипирования полностью.
Куда движется исследование DN-механизмов
Следующий шаг для сообщества, теснее связать структурную биологию комплексов с массовым функциональным скринингом: предсказатели DN должны учитывать интерфейс и котрансляционную сборку по умолчанию, а не как опциональную надстройку. Не менее важна связка лаборатории и клиники, без обратной связи от пациентских данных даже самая точная структурная модель остаётся гипотезой на бумаге, а не основанием для терапии.
— John
Услуги Hopeatrarelabs для моделирования случаев с доминантно-негативным механизмом
Когда генетический отчёт указывает на вероятный DN-механизм, а не простую потерю функции, вопрос выбора терапии становится не теоретическим, а срочным. Такая работа включает построение модели заболевания на iPSC пациента, создание CRISPR-скорректированной изогенной контрольной линии для чистого сравнения, параллельное тестирование библиотеки препаратов и разработку индивидуальных антисмысловых олигонуклеотидов под конкретный мутантный аллель.
Такой подход особенно полезен для пациентов, семей, клиницистов и небольших исследовательских групп, которым нужна работа по конкретному, часто единственному в своём роде случаю (N=1), а не усреднённое решение для широкой популяции. Собственный инструмент оценки аменабельности мишени RINAE помогает приоритизировать, какая модальность, ASO, коррекция генома или подбор существующего препарата, реалистичнее сработает именно для этого варианта. Итоговый пакет данных готовится с расчётом на дальнейшую подачу в регуляторные органы. Если у вас на руках генетический отчёт с подозрением на доминантно-негативный механизм, разумный следующий шаг — оставить заявку на предварительную оценку случая на сайте Hopeatrarelabs и обсудить, какие данные нужны для старта.
This article is general information, not a substitute for advice from a qualified doctor. Consult a qualified healthcare professional about your own circumstances before acting on anything here.
Источники
- Exploring the Molecular Etiology of Dominant-Negative Mutations
- Loss-of-function, gain-of-function and dominant-negative mutations have profoundly different effects on protein structure
Часто задаваемые вопросы
Что означает доминантно-негативная мутация?
Это мутация, при которой изменённый белок активно мешает работе белка дикого типа, обычно встраиваясь вместе с ним в общий комплекс и снижая его суммарную активность значительно ниже уровня, ожидаемого от простой потери одной копии гена, как показано в обзоре молекулярной этиологии DN.
В чём разница между доминантно-негативным эффектом и haploinsufficiency?
При haploinsufficiency у гетерозиготы просто не хватает дозы нормального белка от одной работающей копии гена, тогда как при доминантно-негативном эффекте мутантный белок активно отравляет продукт здорового аллеля, из-за чего суммарная функциональная активность падает сильнее, чем при простой потере одного аллеля.
Что значит термин «доминантно-негативный белок»?
Это белок, продукт мутантного аллеля, который сохраняет способность встраиваться в комплекс с нормальными субъединицами или связываться с общими партнёрами, но нарушает при этом работу всего комплекса или сигнального пути.
Что такое доминантно-негативный аллель?
Это вариант гена, чей продукт вызывает описанный выше доминантно-негативный эффект. Такой аллель проявляется в гетерозиготном состоянии даже при наличии полностью функциональной копии дикого типа, потому что мутантный продукт активно вмешивается в её работу, а не просто отсутствует.
Можно ли лечить доминантно-негативные заболевания добавлением здорового белка?
Обычно нет: простое увеличение количества белка дикого типа не решает проблему, если избыток мутантного продукта продолжает нейтрализовать новые молекулы. Более уместны allele-specific ASO, направленная деградация мутантного продукта или точечное редактирование мутантного аллеля, как обобщено в обзоре терапевтических подходов при эпилептических каналопатиях.