
RNA剪接缺陷通过两条根本路线致病:一是破坏pre-mRNA上的顺式剪接信号(5'剪接位点、3'剪接位点、分支点),二是扰乱转作用剪接因子(SR蛋白、hnRNP、剪接体组分)。两者都会产生异常转录本,随后通过以下几条明确的分子路径引发疾病。
核心致病路线:
- 外显子跳跃→移码/提前终止密码子(PTC)→无义介导降解(NMD)或截短蛋白:SMN1 外显子7跳跃是脊髓性肌萎缩症(SMA)的经典示例。
- 隐匿剪接位点激活→异常延长或截短同工型→功能缺失或显性负效应:深部内含子变异激活伪外显子(pseudoexon)属于此类。
- 内含子滞留→核内滞留或翻译出错→蛋白功能丧失:常见于多种孟德尔遗传病。
- 剪接体基因突变(SF3B1、U2AF1、SRSF2)→广谱剪接重编程→致癌通路激活:在血液肿瘤中尤为突出。
- RNA结合蛋白(TDP-43/FUS)功能失调→靶基因剪接失控→神经退行性病变:与ALS和额颞叶痴呆密切相关。
检测这些缺陷的核心工具包括短读与长读RNA-seq(Oxford Nanopore)、CLIP-seq,以及minigene功能验证。治疗层面,反义寡核苷酸(ASO)如nusinersen、小分子剪接修饰剂如risdiplam已获FDA批准,证明了剪接靶向干预的可行性。
关键要点
RNA剪接缺陷通过破坏顺式元件或转作用因子产生异常转录本,进而经由NMD、截短蛋白、毒性同工型或广谱剪接重编程等路径致病,而RNA-seq联合功能验证是目前将变异与致病性直接挂钩的最可靠工作流。
| 要点 | 详情 |
|---|---|
| 顺式与反式缺陷机制不同 | 顺式元件突变影响单基因剪接,剪接体基因突变(SF3B1等)导致全局性剪接重编程。 |
| RNA-seq是诊断升级的关键 | WES/WGS联合RNA-seq可发现DNA检测漏检的深部内含子和调控区剪接变异,提升诊断率。 |
| 长读测序适合复杂同工型 | Oxford Nanopore长读测序在伪外显子激活和多外显子跳跃组合的解析上优于短读方法。 |
| ASO疗法已有获批先例 | nusinersen(SMA)和eteplirsen(DMD)证明了剪接靶向ASO的临床可行性,risdiplam提供了口服小分子的替代路径。 |
| Hopeatrarelabs 提供全链条验证 | 从患者iPSC建模到并行ASO/药物筛选,Hopeatrarelabs 帮助将剪接变异发现转化为可测试的治疗候选。 |
进一步阅读与关键参考
以下文献是本文核心论点的直接来源,建议在深入研究特定机制或临床应用时优先查阅。
-
RNA-seq在孟德尔遗传病临床诊断中的应用(PMC):支持将RNA-seq纳入临床诊断工作流的系统性证据,适合"检测与诊断"节的深入阅读。Application of RNA sequencing in clinical diagnosis of Mendelian disease
-
剪接调控的计算预测综述(Nature Reviews Genetics):系统评述了从motif评分到深度学习的剪接位点预测方法,讨论了各类工具的敏感性与可解释性权衡。Doi
-
肿瘤剪接体基因突变的基因组研究(Nature Genetics):提供SF3B1、U2AF1、SRSF2等剪接体基因突变作为肿瘤驱动事件的直接基因组证据。Doi
-
剪接变异的全基因组功能注释综述(生物通):总结了从预测到功能验证再到RNA靶向治疗的完整注释策略,适合"检测"与"治疗"节的参考。综述:迈向RNA靶向治疗
-
共转录剪接调控综述(国家生物信息中心):阐述Pol II延伸速率、染色质状态对剪接选择的影响,并提出多靶点干预的未来方向。共转录剪接综述
-
RNA靶向治疗的临床化路径:讨论nusinersen、risdiplam和eteplirsen的机制与挑战,支持"治疗策略"节的临床示例。Doi
This article is general information, not a substitute for advice from a qualified doctor. Consult a qualified healthcare professional about your own circumstances before acting on anything here.
目录
- 正常RNA剪接的核心要素:理解致病的前提
- RNA剪接缺陷致病原理:缺陷类型与分子后果的对应关系
- 代表性疾病中的具体分子机制是什么?
- 如何检测并证明一个剪接变异具有致病性?
- 哪些实验模型能直接测试剪接缺陷的分子效应?
- 针对剪接缺陷,目前有哪些可行的治疗策略?
- Hopeatrarelabs 的患者特异性模型与并行筛选工作流
- Hopeatrarelabs 如何帮助您将剪接变异研究推进到治疗验证?
- 来源
正常RNA剪接的核心要素:理解致病的前提
剪接体(spliceosome)是执行RNA剪接的分子机器,由五种核小核糖核蛋白颗粒(snRNP)组成:U1、U2、U4/U6和U5,以及数百种辅助蛋白。信使RNA的剪接过程是高度动态且易出错的,顺式元件与反式因子共同决定剪接位点的选择。
剪接体的组装遵循严格的顺序:U1 snRNP识别5'剪接位点,U2AF蛋白复合体识别多聚嘧啶区(PPT)和3'剪接位点,U2 snRNP结合分支点腺苷。随后U4/U6·U5三联体加入,完成活性剪接体的构建,催化两步转酯化反应,切除内含子并连接外显子。
顺式元件是剪接精确性的"地址码":
- 5'剪接位点(供体位点):内含子起始处的GU共识序列,由U1 snRNA识别。
- 3'剪接位点(受体位点):内含子末端的AG共识序列。
- 分支点(branch point):距3'端约20–50个核苷酸的腺苷,参与套索中间体形成。
- 多聚嘧啶区(PPT):分支点与3'剪接位点之间的嘧啶富集区,招募U2AF65。
- 外显子/内含子增强子与沉默子(ESE/ESS/ISE/ISS):由SR蛋白和hnRNP识别,分别促进或抑制附近剪接位点的使用。
可变剪接(alternative splicing)让单个基因产生多种蛋白同工型,极大扩展了蛋白质组的多样性。常见类型包括外显子跳跃、内含子滞留、可变5'/3'位点选择和互斥外显子。这种灵活性是把双刃剑:调控可变剪接的信号越复杂,任何一处突变引发错误剪接的风险就越高。
共转录剪接受RNA聚合酶II(Pol II)延伸速率、染色质状态和RNA二级结构等多层次因素调控,这意味着剪接选择并非仅由序列决定,而是嵌入在整个转录调控网络之中。这一认识为靶向共转录节点的干预策略提供了理论依据。
RNA剪接缺陷致病原理:缺陷类型与分子后果的对应关系
剪接缺陷按其发生位置可分为两大类:顺式元件变异和转作用因子异常。两者的分子后果有时重叠,但致病逻辑不同。
顺式元件变异
供体或受体位点的单核苷酸变异可直接破坏U1 snRNA或U2AF的识别,导致该外显子被跳过或相邻内含子滞留。分支点或PPT区的变异同样有效,但因其位置距编码区较远,在常规变异注释中容易被忽视。剪接位点突变不仅限于GU/AG双核苷酸,深部内含子变异、同义变异和调控元件改变同样可显著扰乱剪接,常需RNA水平的功能验证才能判断致病性。
ESE/ESS区域的变异则通过改变SR蛋白或hnRNP的结合亲和力间接影响剪接。深部内含子变异激活伪外显子是近年来被越来越多识别的致病机制,其特征是在内含子中创造出新的剪接位点,插入一段原本不应出现的序列。
转作用因子异常
剪接体组分基因(如SF3B1、U2AF1、SRSF2)的体细胞突变会导致全局性剪接重编程,而非单一基因的剪接改变。RNA结合蛋白(RBP)如TARDBP(TDP-43)和FUS的功能失调则通过丧失对数百个靶基因的剪接调控而致病。
| 缺陷类型 | 直接分子后果 | 代表性疾病/基因 |
|---|---|---|
| 供体/受体位点突变 | 外显子跳跃→移码/PTC→NMD或截短蛋白 | SMN1(SMA)、DMD |
| 分支点/PPT变异 | 内含子滞留→核内滞留或翻译出错 | 多种孟德尔遗传病 |
| ESE/ESS破坏 | 外显子跳跃或隐匿位点激活→异常同工型 | BRCA1、CFTR |
| 深部内含子变异/伪外显子激活 | 插入异常外显子→移码或功能缺失 | OPA1、ABCA4 |
| 剪接体基因突变(SF3B1等) | 广谱剪接重编程→致癌通路激活 | 骨髓增生异常综合征、慢性淋巴细胞白血病 |
| RBP功能失调(TDP-43/FUS) | 靶基因剪接失控→毒性RNA/蛋白聚集 | ALS、额颞叶痴呆 |
专业提示: 评估顺式元件变异时,务必同时考虑组织特异性剪接背景。同一个ESE变异在神经元中可能导致外显子跳跃,在肌肉细胞中却可能仅轻微影响剪接比例,因为不同组织中SR蛋白和hnRNP的相对丰度不同,这直接决定了致病阈值。
代表性疾病中的具体分子机制是什么?
孟德尔遗传病:SMN1与DMD
癌症:剪接体基因突变
多项肿瘤基因组研究表明,SF3B1、U2AF1、SRSF2等剪接体相关基因的突变与肿瘤特有的替代剪接谱改变密切相关,支持剪接体基因突变作为独立致癌事件的观点。
- SF3B1突变(最常见于慢性淋巴细胞白血病和骨髓增生异常综合征)导致隐匿3'剪接位点的广泛使用,产生大量异常转录本,影响细胞凋亡、DNA损伤修复和免疫识别相关基因的剪接。
- U2AF1突变(S34F/Y和Q157P/R)改变U2AF1对3'剪接位点AG二核苷酸上下游序列的偏好,在急性髓系白血病和肺腺癌中产生特征性的剪接异常谱。
- SRSF2突变(P95H/L/R)改变其对ESE序列的识别特异性,导致包含特定基序的外显子被异常包含或跳过,在骨髓增生性肿瘤中尤为突出。
这些突变产生的异常剪接产物可通过多种机制驱动肿瘤:产生截短的肿瘤抑制因子、生成新的致癌融合样同工型,或改变免疫检查点相关基因的剪接,帮助肿瘤细胞逃避免疫监视。
神经退行性疾病:TDP-43、FUS与Tau
**TARDBP(TDP-43)**是ALS和额颞叶痴呆(FTD)的核心病理蛋白。TDP-43正常情况下定位于细胞核,调控数百个靶基因的剪接,包括STMN2(编码stathmin-2,对轴突再生至关重要)和UNC13A。TDP-43功能丧失导致这些靶基因发生内含子滞留或异常外显子包含,直接损害神经元功能。同时,TDP-43在细胞质中的聚集形成毒性包涵体,进一步剥夺细胞核中的正常剪接调控功能,形成恶性循环。RNA-seq数据已在ALS患者脊髓样本中直接证实了STMN2的隐匿外显子包含事件。
FUS的机制与TDP-43相似,同样通过核质转运异常和细胞质聚集导致靶基因剪接失调,在家族性ALS中尤为重要。
**MAPT(Tau蛋白)**的可变剪接改变是另一类神经退行性疾病机制。MAPT外显子10的包含与否决定了Tau蛋白中微管结合重复区的数量(3R-Tau vs 4R-Tau)。额颞叶痴呆中MAPT外显子10剪接调控失衡,导致4R-Tau过度积累,形成神经纤维缠结。这一机制与顺式元件突变(外显子10 5'剪接位点附近的点突变)和反式因子失调均有关联。
如何检测并证明一个剪接变异具有致病性?
临床诊断工作流中的RNA-seq定位
将RNA-seq与WES/WGS联合分析,可以发现仅靠DNA检测容易漏检的剪接破坏性变异,从而提高孟德尔遗传病的诊断率。这一策略在疑难未解病例中尤为有价值,因为许多致病性剪接变异位于深部内含子或调控区域,常规外显子组测序无法覆盖。
在美国临床实验室中,RNA-seq目前主要作为WES/WGS的补充手段,而非独立的一线检测。其核心价值在于将变异的"可能致病性"升级为"有转录本证据支持的致病性",这对于ACMG/AMP框架下的变异分级具有决定性意义。
来源:PMC — RNA sequencing in Mendelian disease diagnosis
技术选择:短读、长读与CLIP-seq
短读RNA-seq(Illumina平台)适合定量剪接事件、检测差异外显子使用和识别异常转录本,是目前临床实验室的主流选择。其局限在于难以解析复杂的多外显子跳跃组合或区分高度相似的同工型。
长读测序(Oxford Nanopore或PacBio)在完整转录本解析上具有明显优势:单次读长可覆盖整个mRNA,直接确认外显子组合模式,对伪外显子激活和复杂同工型的识别尤为准确。代价是测序深度相对较低,对低丰度转录本的检测灵敏度不及短读。
CLIP-seq(交联免疫沉淀测序)用于鉴定RNA结合蛋白(RBP)在全基因组范围内的结合位点,是证实转作用机制的关键工具。当怀疑某个ESE/ESS变异影响特定SR蛋白或hnRNP的结合时,CLIP数据可提供直接的机制性证据。
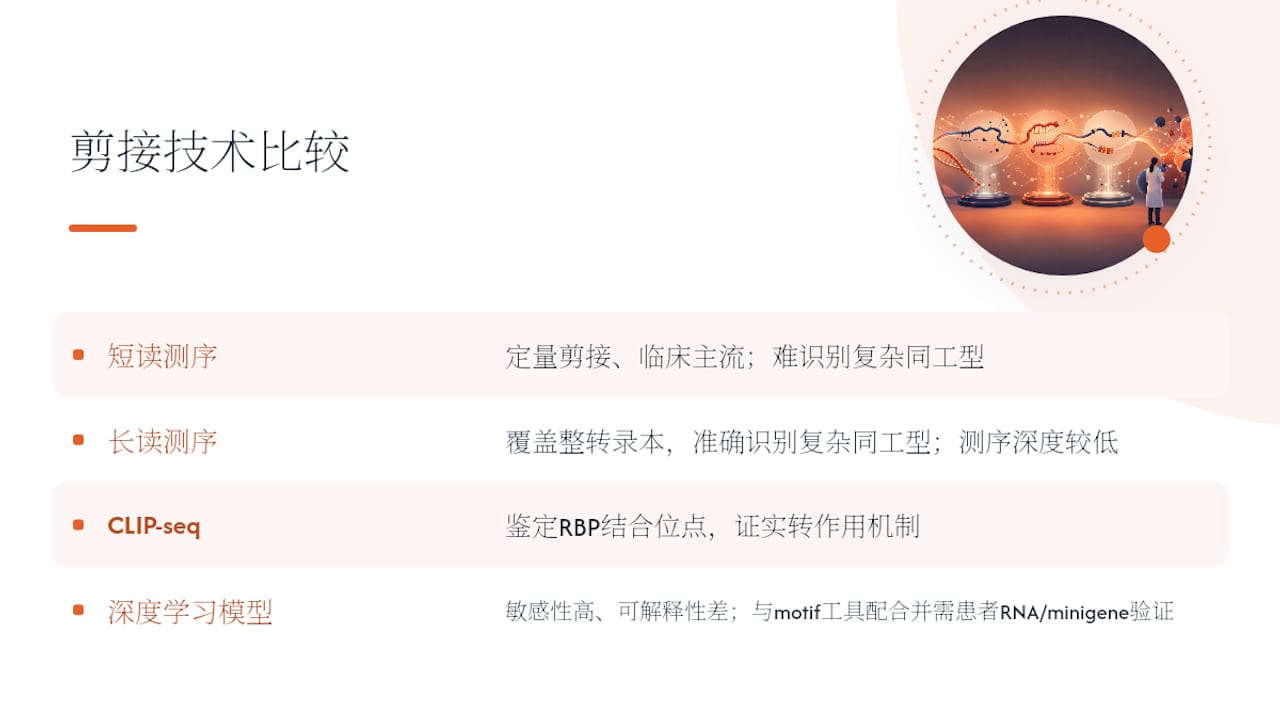
深度学习模型(如SpliceAI、MMSplice)在预测隐匿剪接位点方面显示出更高敏感性,但常缺乏生物学可解释性。实践中建议将其与基于motif的工具(如MaxEntScan)配合使用,以在预测敏感性和机制可解释性之间取得平衡。对剪接变异的全基因组功能注释需要结合深度学习预测与患者RNA或minigene验证,才能为RNA靶向治疗的开发提供可靠依据。
诊断工作流:从变异到致病性证据
- 变异优先级筛选:整合SpliceAI、MMSplice等预测工具,筛选高分值的剪接影响变异,包括深部内含子区域。
- RNA证据获取:患者来源RNA的RT-PCR或RNA-seq,直接观察异常转录本。可参考罕见变异致病性分类框架中的ACMG/AMP证据分级方法。
- 功能验证:minigene剪接实验(当患者样本不可及时)或iPSC衍生靶细胞的转录本分析。
- 临床解读:在ACMG/AMP框架下整合所有证据,将剪接证据作为PS3/BS3级别的功能性证据。
专业提示: 在获取患者RNA样本时,优先选择目标基因高表达的组织(如肌肉活检用于DMD,神经组织用于神经退行性疾病)。血液来源的RNA因许多组织特异性基因表达量极低,可能无法检测到相关剪接异常。
哪些实验模型能直接测试剪接缺陷的分子效应?
选择验证模型时,核心问题是:您需要的是序列上下文的精确性,还是细胞背景的生理相关性?
- minigene系统:将目标外显子及其侧翼内含子序列克隆入报告载体,在细胞系中检测剪接效率。优点是操作简便、不依赖患者样本,适合快速筛查多个变异;局限是缺乏完整的基因组上下文,可能遗漏远端调控元件的影响。
- 患者来源RNA与原位样本分析:直接从患者肌肉、神经组织或血液中提取RNA进行RT-PCR或RNA-seq,提供最具生理代表性的直接证据。受限于样本可及性,尤其是神经组织。
- iPSC衍生的分化细胞模型:将患者成体细胞重编程为iPSC,再分化为靶细胞类型(如运动神经元、心肌细胞),重建组织特异性剪接背景。结合CRISPR工程化可精确引入或纠正特定变异,是ASO和小分子筛选的理想平台。罕见病转录组学应用中详细介绍了如何将这类转录组学证据用于个体化治疗开发。
- 动物模型(小鼠):用于评估长期生理效应、药代动力学和系统毒性,在进入临床前研究阶段不可或缺。但需注意人鼠之间的剪接调控差异,某些人类特异性剪接事件在小鼠中无法完全重现。
专业提示: minigene与iPSC模型并行验证是最稳健的策略。minigene快速确认变异的剪接效应,iPSC模型在生理背景下验证功能后果并测试ASO的纠正效率。两者结合可大幅提高后续治疗开发的成功率。
针对剪接缺陷,目前有哪些可行的治疗策略?
反义寡核苷酸(ASO)与外显子跳过
ASO是目前临床转化最成熟的剪接靶向治疗工具。其机制是通过碱基互补配对结合pre-mRNA上的特定序列,遮蔽或暴露剪接调控元件,从而改变剪接结果。
nusinersen(商品名Spinraza)靶向SMN2 pre-mRNA的ISS-N1元件,促进外显子7包含,增加功能性SMN蛋白产量,已获FDA批准用于SMA治疗。eteplirsen(商品名Exondys 51)靶向DMD外显子51的剪接位点,通过外显子跳过恢复部分阅读框,适用于特定缺失类型的DMD患者。
ASO的主要挑战包括:中枢神经系统递送需要鞘内注射(nusinersen)、长期给药的安全性监测、以及不同患者间的剪接纠正效率差异。
临床已获批的RNA靶向治疗证明了剪接修饰策略的可行性,但也揭示了一个关键现实:ASO的疗效高度依赖于靶基因的剩余表达量和可被纠正的剪接事件比例,这意味着患者选择和分子分层是治疗成功的前提。
来源:Doi
小分子剪接修饰剂
risdiplam(商品名Evrysdi)是口服小分子SMN2剪接修饰剂,通过稳定SMN2外显子7 5'剪接位点处的U1 snRNP结合来促进外显子7包含。与nusinersen相比,口服给药显著改善了患者依从性和可及性。risdiplam的系统分布特性既是优势(可同时作用于中枢和外周),也带来了脱靶剪接修饰的潜在风险,需要长期安全性随访。
小分子剪接修饰剂的开发难点在于实现足够的靶点选择性。剪接调控元件在全基因组范围内广泛存在,针对一个靶点的小分子可能同时影响数十个其他基因的剪接,系统毒性风险不容忽视。
基因疗法与RNA编辑
AAV载体递送正常基因拷贝可绕过剪接缺陷,但受限于AAV的包装容量(约4.7 kb),对于DMD等大基因不适用。微型化dystrophin(micro-dystrophin)的AAV递送是当前的研究方向之一。
基于CRISPR的RNA编辑工具(如REPAIR利用Cas13-ADAR融合蛋白进行A-to-I编辑,LEAPER利用内源性ADAR)在剪接位点修复方面具有理论潜力,但目前仍处于早期研究阶段,递送效率、编辑特异性和免疫原性是主要障碍。
挑战要点:组织特异性递送仍是所有策略的共同瓶颈;长期疗效评估需要多年随访数据;免疫反应(针对AAV衣壳或Cas蛋白)可能限制重复给药;FDA的监管路径因治疗类型不同而有所差异。
Hopeatrarelabs 的患者特异性模型与并行筛选工作流
将剪接变异的分子发现转化为可测试的治疗假设,需要一套整合了多种技术平台的系统性工作流。Hopeatrarelabs 的工作流示意如下:
- 患者样本接入与变异筛选:整合WES/WGS与RNA-seq数据,结合SpliceAI等预测工具识别候选致病性剪接变异,建立分子证据基础。
- RNA证据确认:患者来源RNA的RT-PCR和定量分析,直接证实异常转录本的存在与丰度。
- iPSC建模与CRISPR工程化:将患者细胞重编程为iPSC,分化为靶细胞类型,并通过CRISPR精确引入或纠正变异,建立同基因对照。
- 并行ASO设计与药物筛选:针对已证实的剪接缺陷设计定制ASO,同时对数千种FDA批准药物进行并行筛选,快速识别候选干预手段。
- 候选验证与临床可行性评估:在iPSC模型和(必要时)动物模型中验证候选疗法的分子效果(转录本恢复)、蛋白水平恢复和功能性改善,生成可供临床转化的报告。
典型项目交付物包括:完整的分子证据报告(转录本异常证实)、治疗候选优先级列表、可重复的体外验证数据集,以及临床转化路线图。[案例研究与验证数据待补充:insert case studies or testimonials verifications]
专业提示: 同时运行基于序列的预测(SpliceAI)与患者来源RNA分析,可显著提高选中可修复剪接事件的成功率。预测工具识别候选变异,RNA证据确认实际剪接效应,两者缺一不可。
作者短评:剪接研究中常被低估的难点
在罕见病个体化建模实践中,最常遇到的挑战不是技术本身,而是证据链的完整性。许多剪接变异在预测工具中得分很高,但在患者来源RNA中却只显示轻微的剪接比例变化,这时如何判断其致病性阈值,往往需要结合组织特异性背景和蛋白功能数据综合判断。
未来最值得关注的方向有两个:一是单细胞长读转录组学,它能在单细胞分辨率下解析组织内的剪接异质性,这对神经退行性疾病中细胞类型特异性的剪接失调尤为重要;二是整合染色质状态与Pol II动力学数据,以提高对共转录剪接调控的预测能力。这两个方向的成熟将使从变异发现到治疗假设的路径大幅缩短。
Hopeatrarelabs 如何帮助您将剪接变异研究推进到治疗验证?
对于已识别出候选致病性剪接变异但缺乏验证平台的研究团队,Hopeatrarelabs 提供从分子证据到治疗候选的完整服务链。核心服务包括:患者样本来源的iPSC建模、CRISPR工程化同基因对照构建、定制ASO设计与并行筛选,以及FDA批准药物库的高通量筛查。
每个项目交付完整的分子证据报告、治疗候选优先级列表和可重复的实验协议,让您的科研发现直接对接临床转化路径。如需进一步了解服务流程与合作模式,可访问 Hopeatrarelabs 知识资源页 获取详细信息,或前往 Hopeatrarelabs 主页 了解患者特异性建模与并行筛选的完整能力。
来源
- Application of RNA sequencing in clinical diagnosis of Mendelian disease - PMC
- Doi
- Doi
- 综述:剪接变异的全基因组功能注释与解释:迈向RNA靶向治疗 - 生物通
- 国家生物信息中心合作发表共转录剪接综述:从检测方法、调控机制到疾病治疗----中国科学院北京基因组研究所(国家生物信息中心)