
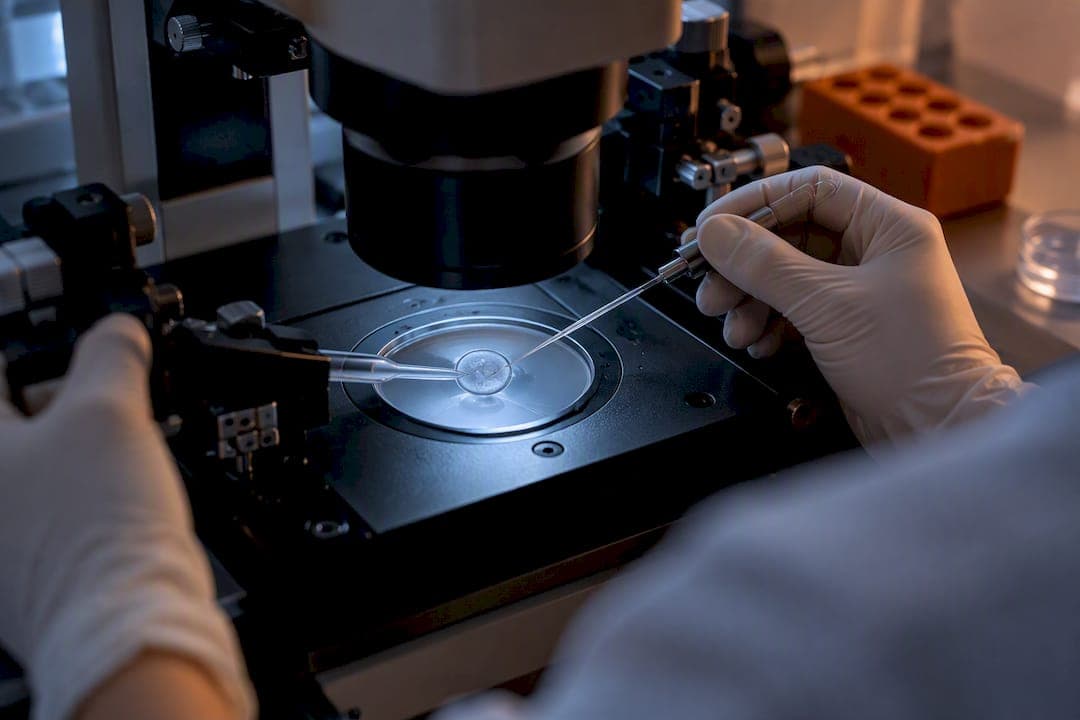
Да, мозаицизм можно существенно снизить: ранняя доставка компонентов CRISPR (в окне 0–10 hpi) в сочетании с RNP‑форматом и контролем времени активности редактора сокращает частоту мозаицизма на порядок — с уровней, близких к максимально возможным, до примерно 10–30% в ряде моделей. Дальше решает не один приём, а их сочетание: правильный выбор гайд‑РНК, синхронизация оплодотворения и многометодная валидация результата.
Кратко:
- Самое эффективное снижение мозаицизма достигается за счёт ранней доставки компонентов редактирования в течение первых 10 часов после оплодотворения.
- Использование комплекса Cas9‑RNP и синхронизация доставки с фазой S‑уже значительно уменьшает вероятность появления различных генотипов внутри одного эмбриона.
- Время активности редактора и его формат (RNP вместо mRNA) напрямую влияют на частоту мозаицизма, сокращая окно возможных ошибок.
- Для подтверждения снижения мозаицизма рекомендуется применять глубокое секвенирование длинными прочтениями и методики с обогащением целевого участка.
- В клинической практике эмбрионы с низким или средним уровнем мозаичности могут быть переносимы при обязательной пренатальной проверке, а не только по лабораторному заключению.
Содержание
- Почему CRISPR редактирует эмбрион неоднородно: механизмы мозаицизма
- Временные окна доставки: что показывают эксперименты 0–10 hpi против 20 hpi
- Cas9, base editors и prime editors: как формат редактора меняет профиль мозаицизма
- Как измерить мозаицизм: покрытие, чувствительность и выбор метода генотипирования
- Дорожная карта снижения мозаицизма: от синхронизации до финальной валидации
- Мозаицизм в клинике: что рекомендуют ESHRE, ASRM и PGDIS
- Практический опыт проверки CRISPR‑скорректированных iPSC‑линий, описанный в отраслевой литературе
- Что дальше: приоритеты для сообщества исследователей
- Услуги Hopeatrarelabs для проверки и снижения мозаицизма в ваших моделях
- Источники и материалы для дальнейшего изучения
- Часто задаваемые вопросы
Почему CRISPR редактирует эмбрион неоднородно: механизмы мозаицизма
Мозаицизм при генном редактировании — это состояние, при котором разные клетки одного организма несут разные генотипы после одной и той же процедуры редактирования. При работе с эмбрионом это означает, что часть бластомеров получит нужную правку, часть — нецелевую мутацию, а часть останется нетронутой. Итог — животное или клеточная линия, состоящая из генетически разных клонов, а не единого редактированного организма.
Корень проблемы — во временной рас синхронизации между моментом внесения компонента редактирования и моментом первого клеточного деления. Если Cas9 разрезает ДНК уже после того, как зигота вступила в S‑фазу или прошла первое деление, разные дочерние клетки получат разные исходы репарации: одна — точную вставку, другая — инделю, третья — ничего. Каждое такое деление до завершения редактирования умножает число генетически различных клонов внутри одного эмбриона.
Отдельный фактор — слияние пронуклеусов. У млекопитающих материнский и отцовский геномы объединяются не мгновенно, и если редактор доставлен до завершения этого слияния, он может подействовать асимметрично на один из геномов, увеличивая долю аллель‑специфичных исходов. Скорость разреза Cas9, доступность хроматина в конкретном локусе и продолжительность существования активного комплекса в цитоплазме — все эти параметры определяют, сколько клеточных циклов «застанет» активный редактор.
Практически это означает следующее:
- Мозаицизм растёт пропорционально числу клеточных делений, прошедших до завершения репарации разреза.
- Открытый хроматин и доступные локусы редактируются быстрее, снижая окно риска.
- Долгоживущий комплекс Cas9 (например, при избытке белка или РНК) продолжает резать ДНК и после первого деления, создавая вторичные, более позднее возникшие клоны.
- Асинхронность слияния пронуклеусов усиливает аллель‑специфичные различия в исходе редактирования.
Для функционального нокаута мозаицизм не всегда враг: он даёт доступ к нескольким аллельным вариантам в одном раунде экспериментов, что удобно для скрининга исходов (данные Mehravar et al., PubMed). Но для получения биаллельного нокаута без дополнительного разведения поколений или для терапевтического редактирования мозаицизм — прямая помеха, требующая контроля с самого начала протокола.
Временные окна доставки: что показывают эксперименты 0–10 hpi против 20 hpi
Разница между ранней и поздней доставкой компонентов редактирования — это, вероятно, самый воспроизводимый экспериментальный результат во всей области. Исследования на эмбрионах крупного рогатого скота фиксируют падение мозаицизма с почти 100% при доставке через 20 часов после оплодотворения (hpi) до 10–30% при доставке в окне 0–10 hpi. Разница в разы, и она воспроизводится в нескольких независимых протоколах, включая варианты с микроинъекцией ооцитов и укороченным циклом ЭКО, описанные в той же серии экспериментов на Nature.
Логика проста: чем раньше редактор попадает в зиготу, тем больше шансов, что разрез и репарация завершатся до первого деления. При доставке на 20 hpi зигота уже, как правило, прошла или проходит S‑фазу, и любые правки происходят вразнобой в уже разделившихся бластомерах.
Практический алгоритм синхронизации времени доставки выглядит так:
- Зафиксировать точное время оплодотворения или активации ооцита — без этого точки отсчёта «0 hpi» не существует.
- Провести инъекцию или электропорацию в диапазоне 0–10 hpi, ориентируясь на конкретную модель (у разных видов длительность зиготной стадии отличается).
- Для моделей с коротким циклом первого деления рассмотреть доставку одновременно с оплодотворением — отдельные протоколы фиксируют минимальный мозаицизм именно при таком совмещении.
- Подтвердить стадию эмбриона визуально перед доставкой, чтобы не пропустить окно из‑за индивидуальной вариабельности в развитии.
- Зафиксировать в протоколе точное время и формат доставки для последующей воспроизводимости и сравнения между партиями.
Ограничение здесь техническое: не каждая модель позволяет работать в столь узком окне. Микроинъекция ооцитов сразу после оплодотворения требует более тонкой манипуляционной техники и повышает риск механического повреждения зиготы. У некоторых видов зигота на этой стадии физически менее устойчива к проколу мембраны, и лаборатории вынуждены искать компромисс между временем доставки и выживаемостью эмбрионов.
Профессиональный совет: Не гонитесь за самым ранним из возможных окон, если это резко снижает выживаемость эмбрионов в вашей модели. Оптимум обычно находится там, где снижение мозаицизма ещё заметно, а процент жизнеспособных зигот остаётся приемлемым для статистически значимой выборки.
Cas9, base editors и prime editors: как формат редактора меняет профиль мозаицизма
Не все редакторы ведут себя одинаково в вопросе времени активности, и это прямо определяет риск мозаицизма. Cas9 делает двуцепочечный разрез и запускает репарацию через негомологичное соединение концов или гомологичную рекомбинацию — оба пути дают вариативные исходы в зависимости от клеточного цикла, в котором произошёл разрез. Base editors и prime editors работают иначе: они не создают двуцепочечный разрыв, а точечно модифицируют основание или вставляют небольшую последовательность через пикирование одной цепи. Это часто снижает долю крупных делеций, но не устраняет проблему мозаицизма как таковую — если комплекс остаётся активным дольше одного клеточного цикла, разные бластомеры всё равно получат разные исходы.
Ключевой параметр для всех типов редакторов — продолжительность их присутствия в активной форме внутри клетки. Отсюда несколько инженерных решений, которые применяют для сужения этого окна:
- Деградационные метки (degron) — слитый с Cas9 или base editor домен, который запускает быструю деградацию белка протеасомой после определённого времени или сигнала, ограничивая длительность его активности.
- Слияния с геминином (geminin‑fusions) — привязка редактора к клеточному циклу через домен Деменина, который деградирует вне определённой фазы, что смещает активность редактора в узкое временное окно.
- Химически индуцируемые системы — редактор остаётся неактивным до добавления малой молекулы‑индуктора, что даёт исследователю прямой контроль над моментом начала редактирования.
- Использование RNP вместо плазмиды или mRNA — рибонуклеопротеиновый комплекс расщепляется клеточными протеазами быстрее, чем транслируется белок с mRNA, что естественным образом сужает окно активности.
Сравнение mRNA и белкового (RNP) формата доставки Cas9 в эмбрионах крупного рогатого скота показало различия в частоте мутаций, мозаицизма и оффтарget‑эффектов между двумя форматами (PMC7749171). Белок доступен для работы сразу после доставки и деградирует быстрее, чем требуется время на трансляцию и накопление белка с mRNA. Практический вывод: если ваша модель допускает работу с готовым белком, переход с mRNA на RNP почти всегда сокращает временное окно активности редактора и, соответственно, уровень мозаицизма — хотя титрование концентрации RNP всё равно нужно проводить отдельно для каждой системы гайд‑РНК.
Как измерить мозаицизм: покрытие, чувствительность и выбор метода генотипирования
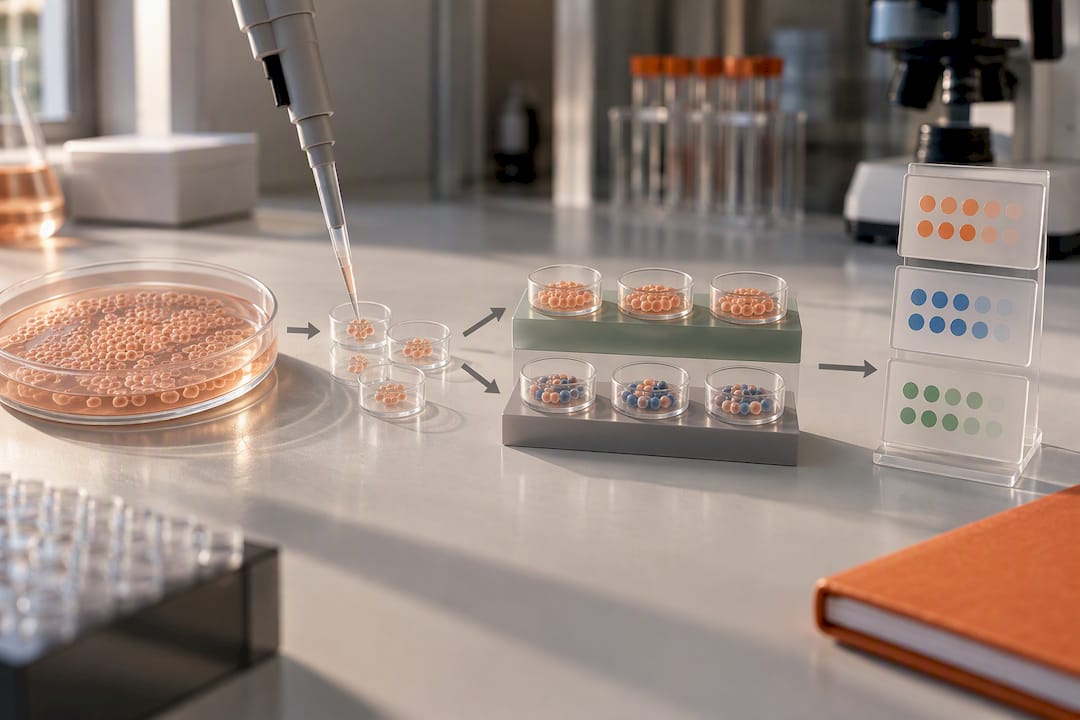
Снизить мозаицизм — половина задачи; вторая половина — доказать, что вы его действительно снизили, а не просто не заметили. Здесь решает не только метод секвенирования, но и глубина покрытия. Для уверенного обнаружения вариантов с частотой около 1% (то есть редких клонов внутри общей популяции клеток) рекомендуется глубокое покрытие секвенирования, порядка сотен раз, иначе низкочастотные аллели тонут в шуме секвенирования и аппликационных артефактах (characterization of CRISPR-Cas9 outcomes with near-perfect long reads).
Стандартная ПЦР с последующим коротким секвенирование часто пропускает крупные структурные варианты — большие делеции, инверсии, вставки транспозонов, — потому что короткие прочтения плохо перекрывают протяжённые перестройки. Здесь на помощь приходят два подхода: long‑read секвенирование и обогащение целевого локуса через Cas9‑enrichment (метод известен под коммерческим названием PureTarget). Комбинация этих двух техник даёт почти полное покрытие целевого региона длинными прочтениями без затрат на секвенирование всего геномва.
| Метод | Типичное покрытие | Что улавливает | Ограничение |
|---|---|---|---|
| Стандартная ПЦР + короткое чтение (NGS) | 100× | Точечные замены, короткие изделия | Пропускает крупные структурные варианты, чувствителен к ПЦР‑биасу |
| Глубокое NGS с UMI | 200× | Редкие клоны (~1% VAF), контроль дупликатов ПЦР | Требует больше исходного материала и более сложной биоинформатики |
| Long‑read секвенирование | Зависит от обогащения региона | Крупные делеции, инверсии, сложные перестройки | Дороже на образец без предварительного обогащения |
| Cas9‑enrichment + long‑read (PureTarget) | Высокое покрытие целевого локуса | Структурные варианты и низкочастотные клоны одновременно | Требует специфичного дизайна направляющих для обогащения |
Уникальные молекулярные идентификаторы (UMI) решают отдельную проблему — они позволяют отличить настоящий редкий вариант от артефакта, возникшего во время амплификации ПЦР. Без UMI легко перепутать реальный мозаичный клон с ошибкой полимеразы, особенно на пределе чувствительности метода. В контрольных экспериментах имеет смысл всегда включать образец необработанной (нетрансфицированной) линии — он покажет базовый уровень фонового шума секвенирования для вашей конкретной постановки.
Дорожная карта снижения мозаицизма: от синхронизации до финальной валидации
Собранные вместе, отдельные тактики дают не аддитивный, а синергетический эффект: комбинация ранней доставки с контролем активности редактора работает заметно лучше, чем каждый приём по отдельности, особенно в моделях с длительным S‑фазовым окном (Scientific Reports). Ниже — последовательность шагов, которую стоит выстраивать именно в этом порядке.
- Синхронизируйте момент оплодотворения или активации. Без чёткой точки отсчёта невозможно контролировать окно доставки — это первый и самый недооценённый шаг.
- Выберите раннее окно доставки (0–10 hpi). Это даёт основной, самый крупный выигрыш в снижении мозаицизма среди всех известных тактик.
- Переходите на RNP‑формат вместо mRNA или плазмиды, если модель это позволяет. Белковый комплекс деградирует быстрее и сужает окно активности редактора естественным путём.
- Рассмотрите доставку компонентов в M‑фазе клеточного цикла. Редактирование до начала репликации ДНК снижает шанс, что разрез застанет клетку посреди деления — хотя на практике это требует точной синхронизации стадии и ограничения времени активности редактора.
- Добейтесь контроля активности редактора через degron или geminin‑слияния, если временные окна доставки в вашей модели физически ограничены логистикой.
- Оптимизируйте дизайн гайд‑РНК — выбор направляющей с высокой эффективностью резки сокращает время, требуемое для завершения редактирования, и снижает вероятность незавершённых или частичных исходов.
- Проведите многометодную валидацию — глубокое NGS с UMI для частот, long‑read или Cas9‑enrichment для структурных вариантов, и обязательно контрольную нератифицированную линию.
Ожидаемый выигрыш от каждой тактики неодинаков. Смена времени доставки с 20 hpi на раннее окно даёт самый крупный скачок — снижение в разы. Переход с mRNA на RNP добавляет второй, меньший, но стабильный выигрыш. Контроль активности через degron‑системы работает как страховка на случай, если временное окно доставки в вашей модели физически не может быть сужено дальше из‑за логистики или выживаемости эмбрионов.
Для разных типов моделей приоритеты смещаются. В работе с эмбрионами млекопитающих главный рычаг — время доставки, потому что окно до первого деления короткое и хорошо изучено. В iPSC‑линиях, где редактирование происходит на уровне делящейся клеточной популяции, а не единственной зиготы, акцент смещается на выбор клона после редактирования и строгую многометодную проверку однородности линии перед биобанкированием. В животных моделях со сложной логистикой овуляции и оплодотворения синхронизация стадии часто оказывается более узким местом, чем сам формат доставки.
Профессиональный совет: Документируйте точное время доставки и формат компонентов (RNP, mRNA, концентрация, объём инъекции) для каждой партии эмбрионов или клеточной линии — без этого невозможно сравнить результаты между экспериментами и понять, какая переменная реально снизила мозаицизм, а какая совпала случайно.
Подробнее о технических деталях доставки, включая сравнение RNP и липидных наночастиц, можно почитать в отдельном обзоре методов доставки CRISPR.
Мозаицизм в клинике: что рекомендуют ESHRE, ASRM и PGDIS
Клиническая интерпретация мозаицизма отличается от лабораторной. Когда мозаицизм обнаружен в эмбрионе после преимплантационного генетического тестирования (ПГТ), вопрос не «редактировать заново», а «переносить или нет». Профессиональные сообщества — Европейское общество репродукции человека и эмбриологии (ESHRE), Американское общество репродуктивной медицины (ASRM) и Международное общество диагностики преимплантационной генетики (PGDIS) — сходятся в одном ключевом пункте: мозаичный эмбрион не следует автоматически отбраковывать.
Обзор клинических данных и позиций этих сообществ показывает, что исходы при переносе эмбрионов с низким и средним уровнем мозаицизма в ряде исследований сопоставимы с исходами эуплоидных эмбрионов (обзор клинических позиций, PMC). Вместо бинарного решения «подходит/не подходит» сообщества продвигают подход стратификации — оценку не только доли аномальных клеток, но и типа хромосомной аномалии, затронутой хромосомы и происхождения мозаицизма.
Практические следствия для клиники:
- Мозаичные эмбрионы低кого уровня рассматриваются как кандидаты на перенос при отсутствии эуплоидных альтернатив, но с обязательной пренатальной верификацией (амниоцентез или биопсия ворсин хориона).
- Тип хромосомной аномалии и то, какая хромосома затронута, влияют на клиническую значимость мозаицизма сильнее, чем сам процент затронутых клеток.
- Решение о переносе должно приниматься совместно с генетическим консультантом, а не только на основании отчёта лаборатории ПГТ.
Отдельный пласт вопросов касается герминального редактирования — то есть правок, которые передаются следующим поколениям. Здесь мозаицизм создаёт не только техническую, но и этическую проблему: непредсказуемое распределение отредактированных и неотредактированных клеток в половых клетках делает последствия для потомства трудно прогнозируемыми. Всемирная организация здравоохранения относит терминальное редактирование к области, требующей особой осторожности и международной координации регулирования, именно из‑за подобных рисков непредсказуемости.
Практический опыт проверки CRISPR‑скорректированных iPSC‑линий, описанный в отраслевой литературе
В работе с пациент‑специфичными iPSC‑моделями Hopeatrarelabs проверяет каждую CRISPR‑скорректированную контрольную линию несколькими независимыми методами генотипирования, а не одним прогоном секвенирования. На практике это означает параллельное тестирование форматов доставки редактора для конкретной мутации и последующую многометодную проверку клона перед тем, как он попадает в скрининг терапий. Такой подход особенно важен там, где мутация редкая и второй попытки создать модель может просто не быть. Опыт подготовки и проверки iPSC‑линий подробнее описан в материале о дифференцировке iPSC в нейроны.
Что дальше: приоритеты для сообщества исследователей
Область остро нуждается в стандартизированном протоколе оценки мозаицизма — сейчас лаборатории используют разные пороги покрытия и разные методы, и результаты между публикациями плохо сопоставимы. Не менее важно, чтобы авторы статей прозрачно указывали точное время доставки в часах после оплодотворения и формат компонентов (RNP или mRNA), а не общие фразы вроде «на стадии зиготы». Без этих деталей воспроизвести чужой протокол почти невозможно. Лучший путь вперёд — межлабораторные консорциумы, которые тестируют одни и те же гайд‑РНК на разных платформах и публикуют сырые данные, а не только итоговые процентные показатели.
— John
Услуги Hopeatrarelabs для проверки и снижения мозаицизма в ваших моделях
Большинство лабораторий решают проблему мозаицизма своими силами — методом проб и ошибок, партией за партией, теряя месяцы на подбор времени доставки и формата редактора. Hopeatrarelabs предлагает готовый путь для проектов, где такой темп недопустим: редкая мутация, ограниченный биоматериал пациента и необходимость получить надёжную модель заболевания с первой попытки.
В работу входит создание персонализированных моделей заболеваний на основе клеток пациента (iPSC) с биобанкированием, создание и многометодная проверка CRISPR‑скорректированных контрольных клеточных линий, а также параллельный высокопроизводительный скрининг большого числа одобренных препаратов на полученной модели. Для проектов, которым нужна не только модель, но и терапевтическая гипотеза, доступны разработка индивидуальных антисмысловых олигонуклеотидов (ASO) с валидацией эффекта in vitro, оценка возможностей генотерапии и подготовка комплексного пакета данных для заявки на клинические исследования. Алгоритмы анализа помогают заранее оценить, насколько конкретная мутация подходит для того или иного терапевтического подхода.
Если ваш проект уже столкнулся с высоким мозаицизмом в контрольной линии или вы только планируете модель для редкого диагноза, начните с изучения полного перечня услуг Hopeatrarelabs и запроса научной дорожной карты по вашему случаю.
Источники и материалы для дальнейшего изучения
Ключевые первоисточники этой статьи: обзор стратегий снижения мозаицизма в Scientific Reports, сравнение форматов доставки Cas9 в PMC7749171, методика характеризации мозаицизма через long‑read секвенирование (Genome Medicine) и обзор клинических позиций профессиональных обществ (PMC10224891).
This article is general information, not a substitute for advice from a qualified doctor. Consult a qualified healthcare professional about your own circumstances before acting on anything here.
Часто задаваемые вопросы
Что такое мозаицизм и почему он считается проблемой?
Мозаицизм — это наличие в одном организме или клеточной линии клеток с разным генотипом, возникшее из‑за неоднородного редактирования на ранних стадиях деления. Проблема в том, что часть клеток не получает нужную правку или получает нецелевую мутацию, что затрудняет получение чистой модели или предсказуемого терапевтического эффекта.
Применяли ли CRISPR на людях?
Да, CRISPR уже использовался в клинических испытаниях и терапиях для людей, включая одобренные методы лечения серповидноклеточной анемии и бета‑талассемии. Отдельно применялась экспериментальная индивидуализированная генная терапия для младенца с редким метаболическим заболеванием, что стало заметным примером персонализированного редактирования генома в клинике.
У всех ли женщин есть мозаицизм?
Соматический мозаицизм в той или иной степени присутствует у большинства людей естественным путём, независимо от пола, из‑за случайных мутаций, накапливающихся при делении клеток на протяжении жизни. Речь здесь о естественном мозаицизме, который не связан напрямую с искусственным редактированием генома CRISPR и его последствиями, обсуждаемыми в этой статье.
Как снизить мозаицизм в CRISPR‑экспериментах на практике?
Наибольший эффект дают ранняя доставка компонентов (окно 0–10 hpi) и переход на RNP‑формат вместо mRNA, что подтверждено данными на эмбрионах крупного рогатого скота. Дополнительный выигрыш даёт контроль активности редактора через degron‑системы и строгий подбор гайд‑РНК.
Значит ли обнаружение мозаицизма при ПГТ, что эмбрион нельзя переносить?
Нет, мозаицизм низкого и среднего уровня не означает автоматической непригодности эмбриона: профессиональные сообщества ESHRE, ASRM и PGDIS рекомендуют оценивать тип аномалии и её долю, а не отбраковывать эмбрион по единственному критерию. Решение о переносе принимается индивидуально, с обязательной пренатальной верификацией.