
Para a maioria das aplicações terapêuticas, um design mixmer com análise de estrutura secundária e filtragem in silico rigorosa produz candidatos com melhor especificidade e perfil de segurança do que o gapmer clássico isolado. Antes de sintetizar seja o que for, três passos são inegociáveis: análise de SNP contra dbSNP, alinhamento por BLAST contra GRCh38 e previsão da estrutura do mRNA alvo. O resto deste artigo detalha o pipeline completo, ferramenta a ferramenta.
Em resumo:
- Favorece o uso de oligonucleótidos com comprimento entre 16 e 20 nucleótidos para equilibrar especificidade e eficiência de ligação, evitando extremos de GC ou motivos poli-G/poli-A problemáticos.
- Optar por gapmers com asas LNA para aplicações hepáticas ou mixmers com mismatch para silenciamento alelo-específico oferece maior precisão e risco controlado, dependendo do objetivo terapêutico.
- Analisar a acessibilidade do mRNA alvo com ferramentas como RNAfold e validações experimentais, como SHAPE, é imprescindível para garantir o sucesso do hibridamento na prática.
- Implementar um pipeline de filtragem que inclua verificação de SNP, alinhamento BLAST e critérios termodinâmicos é fundamental para reduzir off-targets e garantir especificidade do ASO.
- A validação funcional em modelos celulares derivados do próprio doente é cada vez mais necessária, especialmente em SNPs raros e desregulados, sendo recomendada a colaboração com laboratórios especializados.
Índice
- Princípios fundamentais do design de oligonucleótidos antissense
- Gapmer, mixmer e wings: que formato químico escolher
- Como avaliar a acessibilidade estrutural do mRNA alvo
- Que ferramentas reduzem o risco de off-targets?
- Design alelo-específico: mismatches, mixmer e evidência recente
- Da bancada ao in vivo: estabilidade, entrega e imunogenicidade
- Checklist prático: do alvo à síntese em oito passos
- Quando faz sentido recorrer a um laboratório especializado em triagem de ASOs
- O que muda no desenho de ASOs nos próximos anos
- Desenvolva o seu programa de ASO com validação em células reais do doente
- Fontes
Princípios fundamentais do design de oligonucleótidos antissense
Escolher o sítio de ligação certo decide, sozinho, se um ASO funciona ou fica na gaveta. A regra prática mais citada é o comprimento entre 16 e 20 nucleótidos: sequências mais curtas perdem especificidade porque a probabilidade de encontrar essa mesma sequência noutro sítio do genoma sobe rapidamente, enquanto sequências mais longas custam afinidade por nucleótido e complicam a síntese em escala. Este equilíbrio entre eficiência de hibridação e risco de ligação inespecífica é o primeiro filtro que qualquer investigador aplica, muito antes de pensar em química ou entrega.
O conteúdo GC também não é um detalhe cosmético. Fora dessa janela, é preciso compensar com mais bases modificadas, o que encarece o desenho e pode introduzir efeitos secundários. Motivos repetitivos como tratos de poli-G ou poli-A são outro problema recorrente: tendem a formar estruturas secundárias intramoleculares (G-quadruplexes, por exemplo) que bloqueiam a hibridação com o alvo e, em alguns casos, geram ligação inespecífica a proteínas celulares.
Depois há a questão das isoformas. Um gene raramente produz um único transcrito, e desenhar contra uma sequência que não existe na isoforma relevante para a doença é um erro surpreendentemente comum. Verificar as anotações no Ensembl ou no RefSeq antes de fixar a sequência alvo evita esse desperdício de tempo. Quando o alvo atravessa uma junção exão-exão, o ASO pode ser desenhado deliberadamente para essa região, algo particularmente útil em estratégias de splice-switching, como já explorámos num guia prático sobre ASOs moduladores de splicing.
Por fim, quando o programa exige validação pré-clínica em modelos animais, a homologia entre espécies entra na equação desde o início, não como reflexão tardia. Um ASO perfeitamente específico em humano mas sem correspondência no genoma de rato obriga a desenhar uma segunda molécula só para os estudos in vivo, ou a escolher outro modelo.
Resumindo os critérios de triagem inicial:
- Comprimento entre 16 e 20 nucleótidos, equilibrando afinidade e especificidade.
- Conteúdo GC entre 40% e 60%, evitando extremos que exigem compensação química.
- Ausência de motivos poli-G/poli-A com potencial para estruturas secundárias problemáticas.
- Confirmação da isoforma alvo via Ensembl ou RefSeq antes de fixar a sequência.
- Verificação de homologia entre espécies quando houver validação animal planeada.
Gapmer, mixmer e wings: que formato químico escolher
Um gapmer tem uma zona central de ADN flanqueada por «asas» quimicamente modificadas nas duas extremidades. Essa estrutura recruta a RNase H1, a enzima que cliva o híbrido ARN:ADN e degrada o transcrito alvo. É a arquitetura clássica para knockdown de expressão génica e continua a ser a escolha por defeito quando o objetivo é simplesmente reduzir a quantidade de uma proteína patológica.
Um mixmer, em contraste, intercala modificações ao longo de toda a sequência, sem uma zona de ADN contínua suficiente para ativar a RNase H1 de forma eficiente. Isto muda o mecanismo de ação: em vez de clivagem enzimática, o mixmer atua sobretudo por bloqueio estérico, interferindo com o splicing ou com a tradução sem degradar necessariamente o ARN. É esta propriedade que o torna valioso em contextos alelo-específicos, como se detalha mais adiante.
A química das asas determina afinidade, resistência a nucleases e toxicidade:
- Fosforotioato (PS): substitui um oxigénio não-ligante do esqueleto fosfato por enxofre, aumentando resistência a nucleases e melhorando a farmacocinética, mas com custo de alguma toxicidade dependente da dose.
- 2'-O-metilo (2'-OMe): aumenta afinidade e reduz imunogenicidade em relação ao ARN não modificado, mas oferece proteção moderada contra nucleases.
- 2'-metoxietilo (2'-MOE): eleva a afinidade e a estabilidade nuclease de forma mais pronunciada do que o 2'-OMe, sendo a modificação usada nas asas de vários ASOs aprovados.
- LNA (ácido nucleico bloqueado): fornece a maior afinidade por nucleótido entre as opções comuns, permitindo asas mais curtas, mas exige atenção redobrada a efeitos fora do alvo devido à sua elevada estabilidade de ligação.
- PMO (morfolino): neutro em carga, com excelente perfil de segurança e resistência a nucleases, mas incompatível com o mecanismo RNase H, usado quase exclusivamente em designs de bloqueio estérico.
Dica profissional: Não escolha a química das asas isoladamente da aplicação. Um gapmer com asas LNA é potente para knockdown hepático, mas essa mesma potência pode ser desnecessária, e mais arriscada, num contexto de silenciamento alelo-específico no sistema nervoso central, onde a tolerabilidade local pesa mais do que a afinidade máxima.
Para o sistema nervoso central, a tendência é preferir asas 2'-MOE com um número moderado de fosforotioatos, equilibrando penetração tecidual e perfil de segurança local. Para alvos hepáticos, gapmers com LNA e conjugação a GalNAc dominam o desenho atual, aproveitando a captação eficiente por hepatócitos.
Como avaliar a acessibilidade estrutural do mRNA alvo
Um erro clássico é desenhar um ASO com base apenas na complementaridade Watson-Crick, ignorando que o mRNA alvo não existe como uma fita linear e desimpedida. O ARN dobra-se em hairpins, pseudonós e em regiões de emparelhamento intramolecular que podem tornar um sítio teoricamente perfeito completamente inacessível na prática.
Ferramentas como o RNAfold, do pacote ViennaRNA, calculam estruturas secundárias prováveis a partir da sequência e atribuem probabilidades de emparelhamento a cada posição, ajudando a identificar regiões de fita simples com maior probabilidade de hibridação eficiente. Simulações de dinâmica molecular vão mais longe, modelando o comportamento estrutural em três dimensões ao longo do tempo, algo que estudos recentes sobre a complexação entre ASOs e ARN defendem como complemento necessário às predições de estrutura secundária tradicionais, sobretudo quando existem pares não canónicos ou motivos de hairpin relevantes para a acessibilidade real do alvo.
Nenhuma predição computacional substitui a validação experimental. Técnicas como SHAPE (selective 2'-hydroxyl acylation analyzed by primer extension) mapeiam a reatividade química de cada nucleótido em condições próximas das fisiológicas, revelando regiões estruturalmente acessíveis que os modelos in silico por vezes erram. Ensaios enzimáticos com nucleases estrutura-específicas oferecem uma segunda camada de confirmação.
Um workflow prático combina três etapas: gerar um mapa de estrutura secundária com RNAfold para toda a região de interesse, cruzar os resultados com dados de SHAPE publicados (quando existentes para o transcrito) e só depois selecionar os candidatos finais para síntese. Saltar a etapa experimental é aceitável em fases exploratórias, mas arriscado num programa que avança para validação pré-clínica.
Pontos-chave desta etapa:
- A complementaridade de sequência sem contexto estrutural produz uma taxa elevada de candidatos que falham por inacessibilidade.
- RNAfold e ferramentas equivalentes fornecem uma primeira triagem rápida e barata.
- Dinâmica molecular acrescenta resolução tridimensional quando a estrutura secundária simples não basta.
- SHAPE e ensaios enzimáticos continuam a ser o padrão de confirmação experimental.
A acessibilidade estrutural, e não apenas a afinidade de sequência, é hoje reconhecida como um dos fatores que mais separa candidatos que funcionam em bancada dos que falham silenciosamente em ensaios celulares.
Que ferramentas reduzem o risco de off-targets?
Reduzir efeitos fora do alvo exige um pipeline sequencial, não uma verificação isolada. A ordem importa: filtrar por polimorfismos antes de correr alinhamentos poupa tempo computacional e evita eliminar candidatos válidos por variantes irrelevantes para a população-alvo.
- Seleção inicial de candidatos com base nos critérios de comprimento, GC e ausência de motivos problemáticos descritos atrás.
- Filtragem por SNP usando bases como o dbSNP, eliminando ou sinalizando candidatos cuja eficácia dependa de uma variante rara que não está presente em todos os pacientes.
- Alinhamento genómico com BLAST contra GRCh38, identificando hits parciais que possam gerar hibridação inespecífica noutros transcritos.
- Cálculo termodinâmico da energia livre de ligação ao alvo pretendido versus aos hits secundários encontrados no BLAST, priorizando candidatos com margem clara de especificidade.
- Verificação de motivos tóxicos conhecidos, como sequências CpG imunoestimulatórias ou padrões associados a ativação do sistema imunitário inato.
Plataformas dedicadas simplificam esta sequência. O ClinASO integra desenho de gapmers com módulos de homologia multi-espécies e análise de SNP baseada em dbSNP v157, correndo as predições de off-target diretamente contra GRCh38 num único ambiente. O PFRED segue lógica semelhante, mas com maior ênfase em descritores termodinâmicos combinados, permitindo importar identificadores Ensembl e gerar relatórios comparativos entre vários candidatos ao mesmo tempo. Para cenários com múltiplos genomas ou conjuntos de sequências não convencionais, ferramentas mais recentes como o OligoN-design oferecem flexibilidade adicional a partir de ficheiros FASTA personalizados.
Documentar cada etapa, com registos de BLAST guardados e relatórios de SNP arquivados, não é burocracia. É o que torna o processo reprodutível quando outro investigador, ou um comité regulador, precisa de rever as decisões de desenho anos depois.
Design alelo-específico: mismatches, mixmer e evidência recente
A diferença entre um ASO comum e um ASO alelo-específico está, muitas vezes, numa única base mal colocada de propósito. Em doenças dominantes, onde o alelo mutante precisa de ser silenciado sem afetar a cópia saudável, a estratégia passa por posicionar deliberadamente um mismatch dentro do gap do oligonucleótido, exatamente sobre o SNP que distingue os dois alelos.
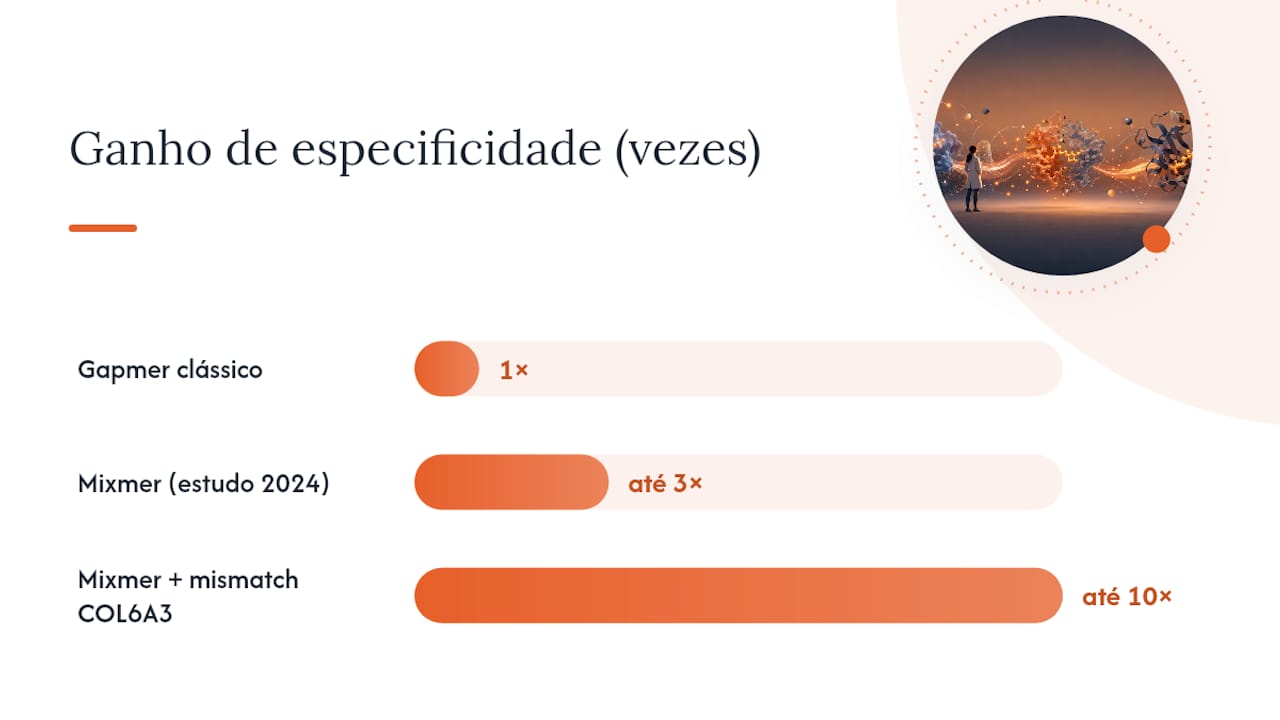
Um estudo publicado em 2024 quantificou este ganho de forma concreta: designs mixmer aumentaram a especificidade até 3 vezes em comparação com o gapmer clássico, testados em células derivadas de doentes. Quando um mismatch estratégico foi introduzido num mixmer direcionado ao gene COL6A3, a especificidade chegou a um ganho de até 10 vezes face ao desenho gapmer convencional. Estes números não são triviais: numa doença onde silenciar o alelo errado tem consequências clínicas, essa margem de discriminação decide se a terapia é viável.
A introdução de um mismatch estratégico dentro do gap, combinada com uma arquitetura mixmer em vez do gapmer tradicional, pode elevar bastante a especificidade alelo-específica, um salto que muda a viabilidade terapêutica de alvos onde o alelo selvagem precisa de permanecer intacto.
A posição do mismatch dentro do gap não é arbitrária. Colocá-lo demasiado perto de uma das asas reduz o impacto discriminativo; posicioná-lo no centro da zona de ADN geralmente maximiza a diferença de estabilidade entre o híbrido correto e o híbrido com o alelo errado. Esta escolha também tem implicações mecanísticas: um gapmer clássico depende quase inteiramente da RNase H1 para clivar o alvo, mas um mixmer com bloqueio estérico pode envolver, em alguns contextos, vias adicionais relacionadas com o complexo RISC, o que muda como a eficácia deve ser medida experimentalmente.
Nem toda a situação justifica esta complexidade. Quando a doença é recessiva, ou quando ambos os alelos contribuem para a patologia, o silenciamento alelo-específico não traz vantagem e só acrescenta risco de falha por especificidade insuficiente. A decisão de investir num design mismatch-mixmer deve vir sempre acompanhada de:
- Confirmação genotípica do SNP-alvo em todas as amostras do doente antes de iniciar o desenho.
- Ensaios paralelos com o alelo selvagem e o alelo mutante, medindo knockdown em ambos separadamente.
- Validação por qPCR alelo-específica para confirmar que a discriminação observada em células reflete a esperada a partir do desenho in silico.
Da bancada ao in vivo: estabilidade, entrega e imunogenicidade
Um ASO que funciona lindamente numa placa de cultura pode falhar completamente num organismo vivo, e a razão quase sempre está na estabilidade frente a nucleases. Modificações como fosforotioato ou 2'-MOE não são apenas otimizações de afinidade: são a diferença entre uma molécula degradada em minutos no soro e uma que sobrevive o suficiente para atingir o tecido-alvo. Estudos sobre a transição in vitro para in vivo reforçam que este processo é essencialmente iterativo, sem uma fórmula única que garanta sucesso na primeira tentativa.
A entrega é o segundo obstáculo. Conjugados como GalNAc direcionam ASOs eficientemente para hepatócitos através do recetor de asialoglicoproteína, mas essa mesma estratégia não funciona para alvos no cérebro ou no músculo. Nanopartículas lipídicas oferecem uma alternativa mais versátil, ao custo de maior complexidade de formulação e potencial imunogenicidade associada aos próprios lípidos. Para alvos no sistema nervoso central, a administração intratecal direta continua a ser, na prática clínica atual, mais fiável do que depender de conjugados sistémicos.
Antes de avançar para modelos animais, três categorias de testes são incontornáveis:
- Ensaios de ativação do complemento e de citocinas pró-inflamatórias, para detetar imunoestimulação precoce.
- Estudos de toxicidade hepática e renal, dado que estes órgãos concentram a maior parte da exposição sistémica a ASOs administrados por via parentérica.
- Confirmação de knockdown sustentado ao longo do tempo, não apenas num único ponto temporal, para estimar a durabilidade do efeito.
Dica profissional: Não avance para estudos in vivo só porque o knockdown in vitro parece excelente. Meça também a especificidade alelo-específica e o perfil de imunogenicidade em pelo menos duas linhas celulares diferentes antes de justificar o custo e o tempo de um estudo animal.
Checklist prático: do alvo à síntese em oito passos
- Definir a sequência alvo confirmando isoforma e junções exão-exão relevantes no Ensembl ou RefSeq.
- Filtrar por SNP contra dbSNP, documentando variantes encontradas e a sua frequência populacional.
- Correr BLAST contra GRCh38 e registar todos os hits com potencial de hibridação parcial.
- Modelar estrutura secundária com RNAfold, priorizando regiões de fita simples acessíveis.
- Escolher a arquitetura química: gapmer para knockdown convencional, mixmer com mismatch para alelo-específico.
- Calcular Tm e energia livre para o alvo pretendido e para os principais hits secundários do BLAST.
- Excluir motivos tóxicos (poli-G, CpG imunoestimulatório) e confirmar ausência de estruturas problemáticas.
- Sintetizar e validar por RT-qPCR e Western blot em pelo menos duas linhas celulares antes de qualquer decisão in vivo.
Cada etapa deve gerar um registo arquivável: relatório de BLAST, tabela de SNPs filtrados, valores de Tm calculados e lista de motivos excluídos. Sem esta documentação, repetir ou defender o desenho perante um revisor torna-se um exercício de memória, não de ciência.
Quando faz sentido recorrer a um laboratório especializado em triagem de ASOs
A Hopeatrarelabs desenha e testa oligonucleótidos antissense personalizados como parte de programas de modelação de doença construídos a partir de células do próprio doente, usando iPSCs e edição por CRISPR para validar mecanismos antes de qualquer decisão terapêutica. Este tipo de infraestrutura acelera a translação sobretudo quando o alvo é raro, o SNP causador não está bem caracterizado na literatura, ou quando é preciso testar em paralelo dezenas de candidatos ASO contra fármacos já aprovados pela FDA e opções de terapia génica.
Quando o desenho computacional já identificou dois ou três candidatos promissores mas falta capacidade para validar knockdown alelo-específico em células reais do doente, a colaboração com um laboratório dedicado costuma poupar meses face a montar essa infraestrutura internamente.
Médicos-cientistas, fundações de doenças raras e equipas de biotecnologia com um alvo genético definido, mas sem capacidade laboratorial própria para triagem paralela, são o público mais direto para este tipo de parceria.
O que muda no desenho de ASOs nos próximos anos
A combinação de dinâmica molecular com aprendizagem automática para prever acessibilidade estrutural vai deixar de ser exceção nos próximos anos, e frameworks abertos como o Oligo Designer Toolsuite apontam nessa direção. O conselho prático para equipas de investigação é simples: não abandonar os pipelines validados (BLAST, dbSNP, RNAfold) para perseguir cada ferramenta nova, mas testar as adições de forma incremental, comparando resultados lado a lado. Partilhar dados de especificidade experimental publicamente, mesmo resultados negativos, acelera todo o campo mais do que qualquer ferramenta isolada.
— John
Desenvolva o seu programa de ASO com validação em células reais do doente
A Hopeatrarelabs é a alternativa a construir esta infraestrutura de raiz: em vez de meses a montar triagens paralelas internamente, o seu laboratório testa oligonucleótidos antissense customizados diretamente em modelos celulares derivados do próprio doente, lado a lado com fármacos já aprovados pela FDA e estratégias de terapia génica.
Isto importa sobretudo quando o SNP-alvo é raro ou mal caracterizado, e a validação em linha celular genérica não basta para confiar no design alelo-específico. O processo de rastreio paralelo de ASOs da Hopeatrarelabs foi construído precisamente para esse cenário, combinando modelação por CRISPR com avaliação de laboratórios especializados que muitas equipas académicas simplesmente não têm capacidade de fazer sozinhas. Se o seu programa já tem candidatos desenhados e precisa de validação funcional rigorosa antes de avançar para estudos pré-clínicos, contacte a equipa da Hopeatrarelabs para discutir o desenho do seu programa personalizado.
Fontes
Para aprofundar o pipeline descrito, consulte o artigo sobre estratégias de design alelo-específico em gapmers, a plataforma PFRED para desenho computacional aberto, e o Clinicaltrials para contextualizar ASOs já em desenvolvimento clínico.
Este artigo fornece informações gerais e não substitui o aconselhamento de um médico qualificado. Consulte um profissional de saúde qualificado sobre o seu caso antes de agir com base neste conteúdo.
- Strategies to improve the design of gapmer antisense oligonucleotide on allele-specific silencing
- wusuw/ClinASO